真核表达技术详解|HEK293与CHO细胞表达系统及重组蛋白制备
原创
真核表达技术详解|HEK293与CHO细胞表达系统及重组蛋白制备
原创
辰辉创聚生物
发布于 2026-10-20 09:37:15
发布于 2026-10-20 09:37:15
一、真核表达的基本原理
真核表达是利用真核细胞的转录、翻译及蛋白加工机制合成目标蛋白的技术。与原核表达相比,真核表达系统能够支持更复杂的蛋白折叠、二硫键形成、糖基化及其他翻译后修饰,适用于多种结构复杂的真核蛋白。
哺乳动物细胞表达是目前重组蛋白制备中常见的真核表达方式,其中HEK293和CHO细胞是应用广泛的两类宿主。两种细胞均能够用于重组抗体、受体胞外结构域、细胞因子及其他分泌型蛋白的表达,但在细胞生物学特征、蛋白加工环境及生产应用方面存在差异。
真核表达的技术目标不仅是获得目标蛋白,还包括维持适当的结构完整性、分子组装状态及预期功能。对于具有复杂结构域、特定糖基化需求或明确生物活性要求的蛋白,表达宿主的选择会直接影响最终产物的性质。
二、HEK293细胞表达系统
HEK293细胞来源于人胚肾细胞,是常用的哺乳动物细胞表达宿主。HEK293及其衍生细胞系具有成熟的细胞培养和基因表达技术基础,广泛应用于重组蛋白制备、病毒载体研究及其他细胞生物学研究领域。
在重组蛋白表达中,HEK293系统常用于分泌型蛋白、受体胞外结构域、细胞因子、抗体及其他需要真核细胞加工的目标分子。其优势在于能够提供哺乳动物细胞的蛋白折叠与翻译后修饰环境,对于部分在原核系统中难以获得正确构象的蛋白具有较好的适用性。
HEK293细胞能够进行多种蛋白翻译后修饰,包括N-连接糖基化及二硫键形成等。对于依赖这些结构特征的蛋白,哺乳动物细胞表达通常比缺乏相应加工能力的原核系统更具适用性。不过,HEK293表达的蛋白并不必然与天然组织来源蛋白具有完全相同的糖链组成、修饰比例或分子组装状态。
HEK293表达系统也常用于瞬时表达,即通过外源核酸将目标基因导入细胞,在一定时间范围内获得目标蛋白。瞬时表达不要求先建立稳定整合目标基因的细胞群体,适用于研究用蛋白制备及候选分子的初步评价。其实际表达水平受到目标序列、构建体设计、细胞状态及蛋白本身特征等多种因素影响。
三、CHO细胞表达系统
CHO细胞即中国仓鼠卵巢细胞,是生物制药及重组蛋白生产中应用广泛的哺乳动物细胞宿主。CHO细胞具有成熟的培养体系、较完善的工艺开发基础及丰富的生产应用经验,在单克隆抗体和其他复杂重组蛋白的规模化生产中占据重要地位。
CHO表达系统能够支持多种真核蛋白的折叠、二硫键形成和糖基化等加工过程,适用于抗体、融合蛋白、受体相关蛋白及其他需要哺乳动物细胞环境的目标分子。其应用优势不仅来自细胞本身的加工能力,也与长期发展的细胞培养、表达调控和生产工艺体系有关。
CHO细胞可用于瞬时表达,也可用于稳定表达。稳定表达体系通过建立能够持续表达目标蛋白的细胞群体,为长期生产及规模化制备提供基础。与瞬时表达相比,稳定表达涉及细胞株建立、表达稳定性及细胞群体特征等额外技术考量。
CHO细胞具有哺乳动物细胞的蛋白加工能力,但其糖基化特征并不与人源细胞完全一致。不同CHO细胞系、培养环境及表达分子的结构特征均可能影响最终蛋白的糖链组成和其他质量属性。因此,不能仅凭采用CHO表达,就推断蛋白的翻译后修饰与人体天然蛋白完全相同。
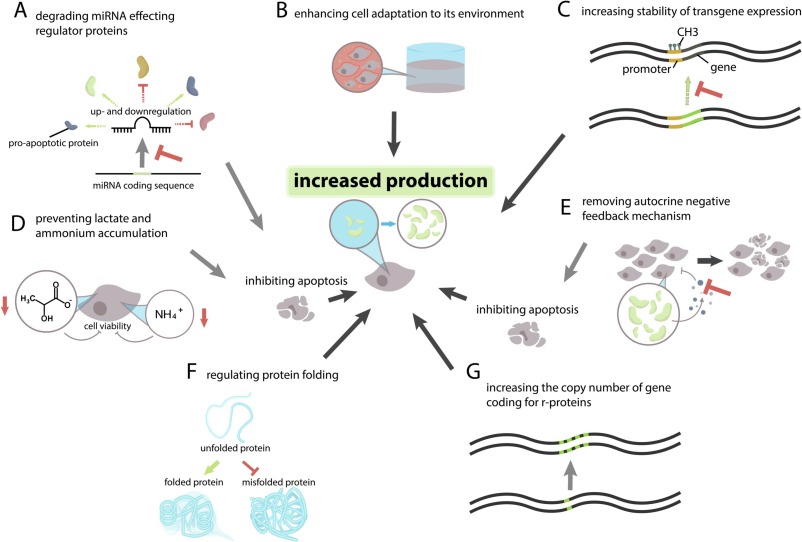
recombinant protein expression
四、HEK293与CHO表达系统的主要区别
HEK293和CHO均属于哺乳动物细胞表达系统,能够支持复杂蛋白的折叠及多种翻译后修饰,但两者在常见应用场景和技术特点方面存在差异。
比较维度 | HEK293表达 | CHO表达 |
|---|---|---|
宿主来源 | 人胚肾细胞来源 | 中国仓鼠卵巢细胞来源 |
常见表达形式 | 瞬时表达应用广泛,也可建立稳定表达体系 | 瞬时表达及稳定表达均有广泛应用 |
常见研究对象 | 受体胞外结构域、细胞因子、抗体及其他复杂蛋白 | 单克隆抗体、融合蛋白及其他重组蛋白 |
蛋白加工 | 支持哺乳动物细胞的多种折叠与翻译后修饰过程 | 支持哺乳动物细胞的多种折叠与翻译后修饰过程 |
典型应用特点 | 常用于研究用蛋白制备及候选分子的早期研究 | 在抗体及其他重组蛋白的规模化生产中应用广泛 |
两种表达系统不存在适用于所有目标蛋白的绝对优劣。HEK293与CHO在细胞来源、表达构建、糖基化特征及培养体系方面的差异,可能影响特定蛋白的表达水平、分子组成和功能表现。
对于科研用途的重组蛋白,选择HEK293还是CHO,应结合目标蛋白的结构复杂程度、表达形式、预期翻译后修饰及实验用途综合判断,而不能仅根据宿主名称确定表达效果。
五、真核表达中的蛋白折叠与翻译后修饰
真核表达的重要特点之一,是宿主细胞能够为目标蛋白提供相对复杂的折叠及加工环境。蛋白合成后,其多肽链需要形成适当的三维构象,并可能经历糖基化、二硫键形成、蛋白水解加工及其他翻译后修饰。
1. 糖基化修饰
糖基化是许多分泌蛋白和细胞表面蛋白的重要结构特征,主要包括N-连接糖基化和O-连接糖基化。糖链可能影响蛋白折叠、稳定性、溶解性、分子识别及体内性质。
HEK293与CHO均能够进行多种糖基化修饰,但不同宿主产生的糖链结构及其相对比例可能存在差异。糖基化程度也会受到蛋白序列、糖基化位点可及性及细胞培养环境等因素影响。因此,对于糖链与生物学功能密切相关的目标蛋白,需要将糖基化特征纳入质量评价。
2. 二硫键形成与蛋白折叠
二硫键能够稳定部分蛋白的空间构象,在抗体、细胞因子及多种分泌型蛋白中具有重要作用。真核细胞的内质网等细胞结构参与分泌蛋白的折叠与质量控制,有助于部分复杂蛋白形成适当构象。
不过,宿主具备二硫键形成能力,并不意味着所有目标蛋白都能自动形成正确的二硫键配对。蛋白序列、结构域组成、亚基组装及分子本身的折叠特征,仍然会影响最终构象。
3. 蛋白加工与分子组装
部分真核蛋白在成熟过程中需要经过信号肽切除、前体蛋白加工或多亚基组装。对于这类目标分子,表达构建体与成熟蛋白之间的关系,以及各亚基的组成和相互作用,均可能影响最终产品的结构与功能。
因此,评价真核表达产物时,需要区分蛋白是否成功合成、是否完成预期加工,以及是否形成了与目标分子相符的结构状态。
六、真核表达蛋白的纯化与质量评价
真核表达产物的质量评价通常包括蛋白身份、纯度、分子量、结构完整性、聚集状态及生物活性等方面。不同检测方法提供的信息具有互补性,不能仅凭单一指标判断蛋白质量。
1. 蛋白身份与纯度分析
SDS-PAGE可用于观察蛋白样品的电泳迁移特征及主要杂质分布;Western blot可结合特异性抗体辅助确认目标蛋白身份;质谱分析则可进一步辅助鉴定蛋白序列及相关翻译后修饰。
由于真核表达蛋白可能具有糖基化等修饰,其表观分子量可能与根据氨基酸序列计算的理论分子量存在差异。对于存在不同糖基化形式或成熟加工过程的蛋白,应结合其分子特征解释电泳结果。
2. 聚集状态与样品均一性
体积排阻色谱(SEC)可用于分析蛋白样品的分子尺寸分布,辅助评价单体、寡聚体及聚集相关组分。对于抗体、融合蛋白及受体胞外结构域等目标分子,聚集状态可能影响分子间相互作用、有效浓度及实验重复性。
蛋白纯度与样品均一性属于不同的质量指标。样品中目标蛋白占比较高,并不意味着所有蛋白分子均具有相同的构象或组装状态,因此需要结合适当的分析方法进行评价。
3. 生物活性与分子相互作用
对于酶类蛋白,可根据其功能采用相应酶学检测;对于受体和配体,可采用ELISA、表面等离子体共振(SPR)或生物膜干涉技术(BLI)分析结合特征;对于具有明确细胞功能的蛋白,则可结合相应细胞模型评价其功能响应。
分子结合能力与细胞功能并不完全等价。检测到蛋白之间的结合信号,不能直接证明该蛋白在细胞环境中具有完整的预期功能。活性评价应结合目标蛋白的功能属性、实验体系及具体检测终点进行解释。
七、真核表达与原核表达的技术选择
真核表达与原核表达的主要区别在于宿主的细胞结构、蛋白加工能力及翻译后修饰特征。原核表达通常具有培养周期短、成本相对较低及遗传操作便利等优势,适用于许多结构相对简单的蛋白。真核表达则能够支持更复杂的折叠、分泌加工及翻译后修饰,适用于部分依赖这些过程的目标分子。
对于需要特定糖基化、复杂二硫键配对或真核细胞加工环境的蛋白,HEK293或CHO等哺乳动物细胞系统通常更值得评估。对于不依赖特定真核修饰的蛋白,原核表达也可能满足相应研究需求。
原创声明:本文系作者授权腾讯云开发者社区发表,未经许可,不得转载。
如有侵权,请联系 cloudcommunity@tencent.com 删除。
目录
腾讯云开发者

Copyright © 2013 - 2026 Tencent Cloud. All Rights Reserved. 腾讯云 版权所有
深圳市腾讯计算机系统有限公司 ICP备案/许可证号:粤B2-20090059  粤公网安备44030502008569号
腾讯云计算(北京)有限责任公司 京ICP证150476号 | 京ICP备11018762号