文献分享(xenium)--组织驻留巨噬细胞转移硒转运蛋白保护胰腺癌免于铁死亡
原创
文献分享(xenium)--组织驻留巨噬细胞转移硒转运蛋白保护胰腺癌免于铁死亡
原创
追风少年i
发布于 2026-10-02 08:28:12
发布于 2026-10-02 08:28:12
作者,Evil Genius
今天我们分享文献,一篇cell在手,晋升几乎畅通无阻,也说明了多组学是必然的趋势。
摘要
胰腺导管腺癌(PDAC)是一种侵袭性癌症,预后不良,其肿瘤微环境中包含肿瘤发生前就存在的组织驻留巨噬细胞(RTMs)和肿瘤发展过程中招募的单核细胞来源巨噬细胞(MDMs),但它们在支持肿瘤进展中的不同作用仍不清楚。结合单细胞profiling、空间分析、谱系追踪、RTM耗竭和硒示踪,研究发现RTMs优先定位于肿瘤边界,在那里它们促进上皮-间充质转化(EMT)、肿瘤生长和转移。机制上,RTMs通过LRP8依赖性摄取将硒转运蛋白Selenop转移给EMT肿瘤细胞,增加肿瘤细胞硒可用性,限制脂质过氧化,并保护EMT肿瘤细胞免于铁死亡。RTM特异性Selenop缺失或肿瘤细胞Lrp8破坏减少了EMT和肿瘤进展,而铁死亡抑制逆转了RTM耗竭的效果。人类PDAC显示边界富集的SEPP1⁺RTMs靠近EMT肿瘤细胞,提示一种保守的巨噬细胞来源的硒生态位支持侵袭性肿瘤状态,并突出靶向RTMs或其分泌因子在PDAC中的潜力。
引言
PDAC的临床挑战
- PDAC占胰腺癌的90%以上,仍然是最致命的实体瘤之一,5年生存率低于13%。
- 开发有效疗法的一个主要障碍是肿瘤微环境(TME)的独特组成,这使PDAC肿瘤在宿主免疫和免疫治疗方面都是"冷"的,因此免疫治疗对PDAC患者没有显示出显著获益。
TME的重要性
- 改善PDAC治疗需要更深入地理解TME,特别是其免疫区室。
- PDAC TME包含致密基质、癌症相关成纤维细胞和多样免疫群体,与癌细胞相互作用。
- 其中,肿瘤相关巨噬细胞(TAMs)调控CD8 T细胞排除、血管生成、纤维化和上皮-间充质转化(EMT),使其成为重要的治疗靶点。
- 单细胞分析已解析跨肿瘤的巨噬细胞多样性。在PDAC中,TAMs包括组织驻留巨噬细胞(RTMs),在肿瘤发生前存在,以及单核细胞来源巨噬细胞(MDMs),在肿瘤进展过程中招募。
区分巨噬细胞群体的挑战
- 然而,区分巨噬细胞群体、追踪其空间定位以及定义其在肿瘤中的功能仍然具有挑战性。
- 先前的研究阐明了MDMs在代谢性脂肪性肝病和PDAC中的时空演化及重编程,但RTMs的可比较分析受到缺乏追踪或耗竭工具的限制。
- 最近的工作表明RTM发育起源影响胰腺疾病,RTMs在PDAC中采用炎症状态,但在胰腺炎中起保护作用。然而,疾病信号如何与稳态线索交叉以在肿瘤进展过程中塑造RTM功能仍不清楚。
研究目标
- 研究团队旨在开发一种强大的工具来识别肿瘤内的RTMs,并使用该工具在小鼠PDAC进展过程中剖析RTMs的作用。
- 结合Ms4a3-based单核细胞命运映射、单细胞profiling和Mrc1CreERT2RosaTdTRosaDTR小鼠模型追踪、追踪和耗竭PDAC进展过程中的RTMs。
- 结果揭示肿瘤边界RTMs分泌Selenop,保护EMThi肿瘤细胞免于铁死亡并支持EMT。
结果部分 1:健康和胰腺癌中RTMs和MDMs的保守特征
研究策略
- 为了研究PDAC中RTMs和MDMs的功能特征,首先需要在正常和肿瘤组织中可靠地区分它们。
- 为此,利用粒细胞-单核细胞祖细胞(GMP)命运映射Ms4a3CreRosaTdT小鼠,其中MDMs用Tomato荧光标签标记,而胚胎来源的RTMs则没有。
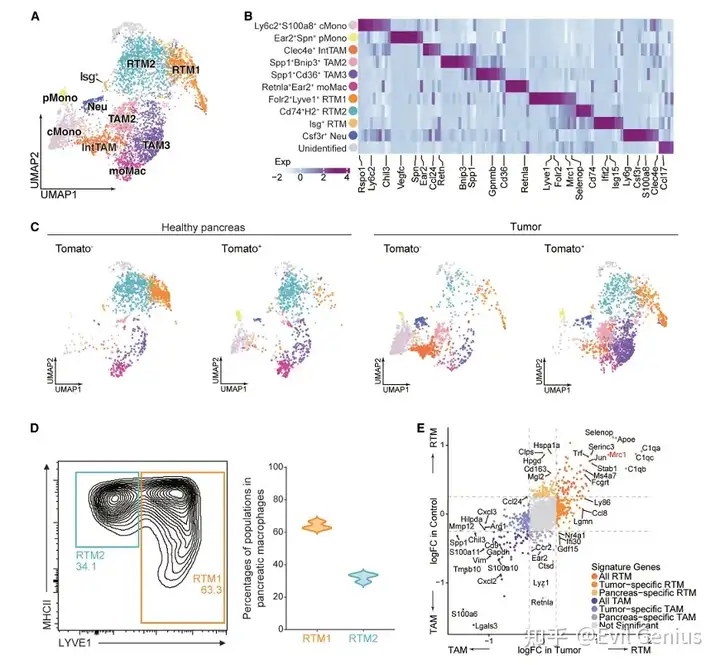
- 对来自无肿瘤荷瘤小鼠健康胰腺的Tomato+和Tomato-巨噬细胞的bulk RNA测序(RNA-seq)以及对Ms4a3CreRosaTdT小鼠胰腺肿瘤的scRNA-seq揭示不同的基因特征。
- MDMs和RTMs之间的差异表达基因(DEGs)包括在RTMs中高表达的Tfrc4和Cd209b,以及在MDMs中富集的Spp1、Chil3、S100a8和Gdf3。
RTM亚群鉴定
- 使用这些DEGs识别PDAC中的RTMs,通过重新分析最近发表的scRNA-seq(snRNA-seq)鼠PDAC数据集(来自时间戳小鼠模型Ms4a3CreERT2RosaTdT)。
- 基于Tomato标记、组织来源以及RTM和MDM签名基因的投影,定义三个 distinct RTM亚群:Folr2+Lyve1+RTM1(Folr2、Lyve1、Mrc1和Selencop)、Cd74+H2+RTM2(Cd74、H2-Aa和Isg+RTM(Irf2和Isg15)。
- 由于这些数据集中Isg+RTMs相对较少,从进一步分析中排除。RTMs富集在健康胰腺的Tomato-巨噬细胞中,表明RTM1代表真正的RTM亚群,也可以被MDMs补充在TME中。
- 正如预期从基因特征,RTM1和RTM2可以通过流式细胞术基于其淋巴管内皮透明质酸受体1(LYVE1)表达识别。
- 分选的群体富集不同的基因表达通路:RTM1在胞吞作用和胞吐作用中富集,RTM2在细胞激活中富集。
- 还识别出四种巨噬细胞亚群表达高MDM签名:三种TAM群体,Clec4e+中间TAM(IntTAM)、Spp1+Bnip3+TAM2和Spp1+Cd36+TAM3,如先前报道;以及一个富含健康胰腺的Retnla+Ear2+单核细胞来源的巨噬细胞样群体(moMac)。
- 识别健康胰腺和肿瘤条件下RTMs和TAMs之间的DEGs。其中,Mrc1(编码CD206)在RTMs中显著表达,包括主要的RTM1s、RTM2s和Isg+RTMs。
- 流式细胞术免疫表型进一步确认胰腺组织中的Tomato-RTMs表达高水平的CD206、Tim4、Lyve1和CD209b。因此,Mrc1可能是识别胰腺中所有RTM亚群的候选基因。
结果部分 2:植入前RTM耗竭限制PDAC进展并调节EMT
RTM空间分布
- 为了研究RTMs在PDAC中的作用,首先使用Visium空间转录组数据分析其分布。
- 从Ms4a3模型衍生的RTM签名的投影显示RTMs优先富集在肿瘤周围区域,在植入后2周和6周。
- 没有观察到RTM1和RTM2亚群之间的明显空间差异。
- 类似的肿瘤边界周围富集已在鼠肺癌模型和人类原发性和转移性癌症中报道,提示RTMs在肿瘤边界的保守空间定位模式和潜在特化功能。
RTM耗竭模型
- 由于Mrc1在稳态下由RTMs特异性表达,使用Mrc1构建小鼠模型以在PDAC中 fate-map RTMs。
- 开发Mrc1CreERT2小鼠品系并与RosaTdT小鼠杂交。他莫昔芬标记确认Mrc1CreERT2RosaTdT小鼠在健康组织中追踪胰腺RTMs。
- 接下来,在PDAC原位注射前给予他莫昔芬治疗Mrc1CreERT2RosaTdT小鼠,并在PDAC生长过程中追踪Tomato-胰腺RTMs。
- Mrc1CreERT2模型本身不通过当前CD206表达识别RTMs。相反,它依赖于他莫昔芬诱导的肿瘤前标记来永久标记肿瘤建立前表达CD206的巨噬细胞。
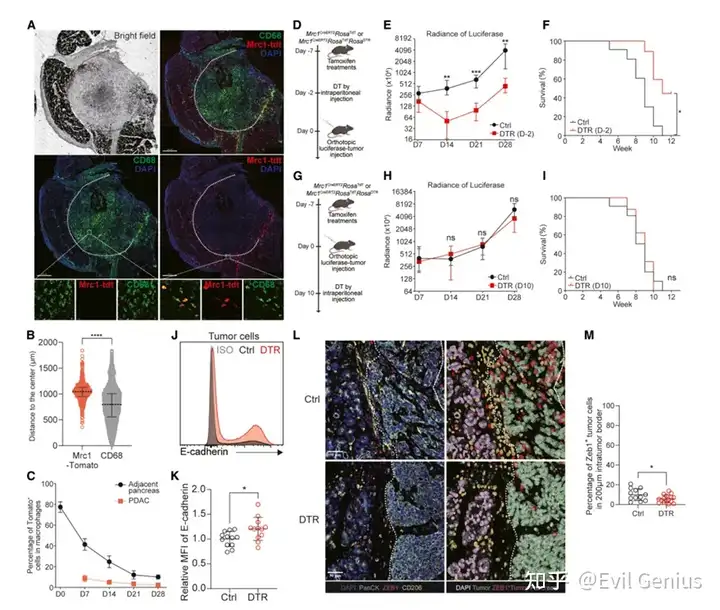
- 在PDAC中的空间分析确认Tomato-RTMs富集在肿瘤边界,而Tomato-CD68+巨噬细胞浸润肿瘤核心,与Visium数据一致。
- 在相邻胰腺实质和肿瘤中观察到Tomato-巨噬细胞比例的逐渐减少,可能由于招募的Tomato-MDMs稀释,这与Ms4a3CreERT2RosaTdTPDAC模型中的观察一致。
- 在Ms4a3CreERT2RosaTdT小鼠中,CD206表达在Tomato-巨噬细胞(MDMs)上逐渐增加,但在Tomato-Folr2+RTMs(Ms4a3-)上保持较低。类似的CD206+巨噬细胞比例和分布的变化也在携带杂合KrasG12D和Trp53R172H改变的自发性PDAC模型(LSL-KrasG12D; LSL-Trp53R172H; Pdx1Cre, KPC小鼠)中观察到。
RTM功能验证
- 接下来通过生成Mrc1CreERT2RosaTdTRosaDTR小鼠品系来特异性耗竭RTMs,以解决RTMs在肿瘤进展中的功能意义。
- 他莫昔芬治疗后,在肿瘤植入前给予白喉毒素(DT)。这在原位肿瘤植入前和初始疾病窗口耗竭RTMs的模型中建立。
- 植入前RTM耗竭显著抑制肿瘤生长并延长小鼠生存。
- 相比之下,肿瘤植入后10天开始DT治疗对肿瘤生长或生存没有显著影响,表明RTMs可能在初始阶段起关键作用,此时RTMs相对于MDMs仍然突出。
EMT调节
- RTMs在初始巨噬细胞定义窗口支持肿瘤进展的一种可能方式是通过促进肿瘤细胞侵袭和TME局部重塑,如在鼠肺癌和胰腺癌模型中所示。
- 首先检查RTM耗竭是否改变其他免疫细胞群体的组成,但肿瘤植入后没有观察到显著变化。
- 一致地,scRNA-seq分析显示可比较的免疫细胞组成,特别是Treg和Tex群体,在植入前RTM耗竭组中。
- 接下来评估肿瘤细胞增殖是否对RTM耗竭后的生长差异有贡献。植入前和植入后10天RTM耗竭都没有导致肿瘤细胞增殖显著增加,与对照组相比,表明增殖不是植入前RTM耗竭后观察到的肿瘤生长差异的原因。
- 值得注意的是,来自植入前RTM耗竭小鼠的肿瘤细胞显示E-钙粘蛋白表达增加,这在10天RTM耗竭组中没有观察到。
- E-钙粘蛋白表达表明RTMs可能在这个窗口内影响上皮-间充质动力学。
- 与这一假设一致,小鼠PDAC Visium数据集显示RTMs优先定位于具有更高EMT签名的肿瘤区域。
- E-钙粘蛋白+肿瘤细胞(EMTlo)的百分比在肿瘤边界(200 μm内)的植入前RTM耗竭组中显著增加,而ZEB1+肿瘤细胞(EMThi)的百分比在肿瘤边界降低。
- 因为RTM耗竭也被报道在自发性胰腺肿瘤模型中抑制发育,在独立的KPC模型中扩展分析。一致地,RTM耗竭类似地降低了肿瘤边界处ZEB1+肿瘤细胞(EMThi)的百分比,与对照组相比。
- 鉴于EMT在驱动肿瘤转移中的已建立作用,进一步评估转移负担,发现植入前RTM耗竭显著降低转移质量,与对照相比。总之,这些发现表明肿瘤边界的RTMs增强EMT并支持PDAC进展和转移播散。
结果部分 3:RTMs的进行性签名与肿瘤EMT负相关
验证方法
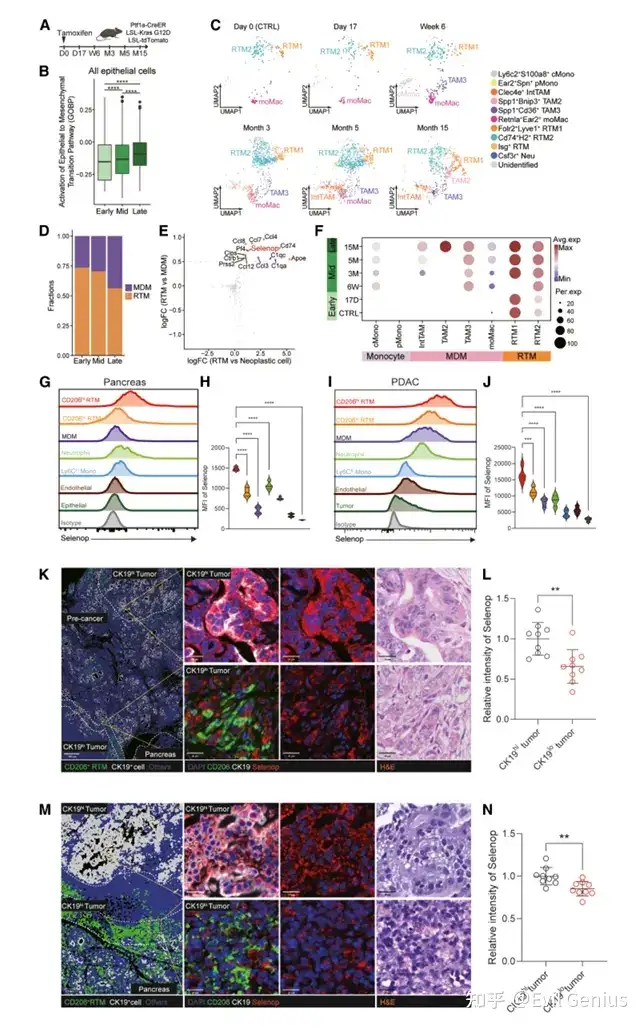
- 为了在更生理相关的PDAC模型中验证这些发现,其中肿瘤细胞经历进行性发育并表现出异质性EMT状态,分析了来自可诱导Ptf1aCre; LSL-KrasG12D; LSL-Trp53R270H(PRT)小鼠的公开scRNA-seq数据集,跨越正常胰腺、癌前病变和胰腺癌。
- 该数据集为概括自然肿瘤发生和EMT过程提供了稳健模型。
- 此外,利用来自自发性PDAC(Ptf1aCre; LSL-KrasG12D; Trp53R172H或Trp53R270H)模型的另一个well-annotated scRNA-seq数据集,进一步注释这些上皮细胞。
- 通过将上皮细胞聚类为15个亚群,定义了一个新生群体子集,包括胃样和祖细胞样癌前细胞和恶性细胞,以进行进一步分析。
EMT动态
- 使用来自PRT模型的scRNA-seq数据分析了肿瘤进展不同时间点的上皮细胞。
- 与EMT活动的动态变化一致,早期时间点RTMs是主要的巨噬细胞群体,但随着肿瘤发生,RTMs的比例下降。
- 与在整个肿瘤进展过程中RTMs中Mrc1表达逐渐降低一致。
- 与MDMs相比,RTM1s中代谢通路活动相对较高,包括Mtr、Kyat1和Txndc3等通路相关基因。
Selenop鉴定
- 测量胰腺细胞中的Selenop蛋白水平,进行细胞内染色和流式分析。该分析揭示Selenop蛋白水平在CD206+RTMs中显著高于其他免疫和非免疫细胞。
- 接下来,评估肿瘤中Selenop蛋白的空间分布。Selenop蛋白水平在CK19hi肿瘤区域显著高于CK19lo区域,后者位于RTM富集的肿瘤边界,来自自发性模型和原位肿瘤模型。
- 这一增加不是来自肿瘤中性粒细胞,因为它们不显著表达Selenop。这些发现表明Selenop在早期RTM1s和EMTlo肿瘤细胞中大量表达,并且其表达与上皮细胞的EMT活动负相关。鉴于这一独特特征以及RTMs共定位于相同的肿瘤周围区域(EMT发生的地方),以及Selenop在调节活性氧(ROS)水平中的作用,假设RTM衍生的Selenop可能潜在参与EMT调节。
结果部分 4:RTMs通过Selenop促进肿瘤细胞EMT
Selenop功能验证
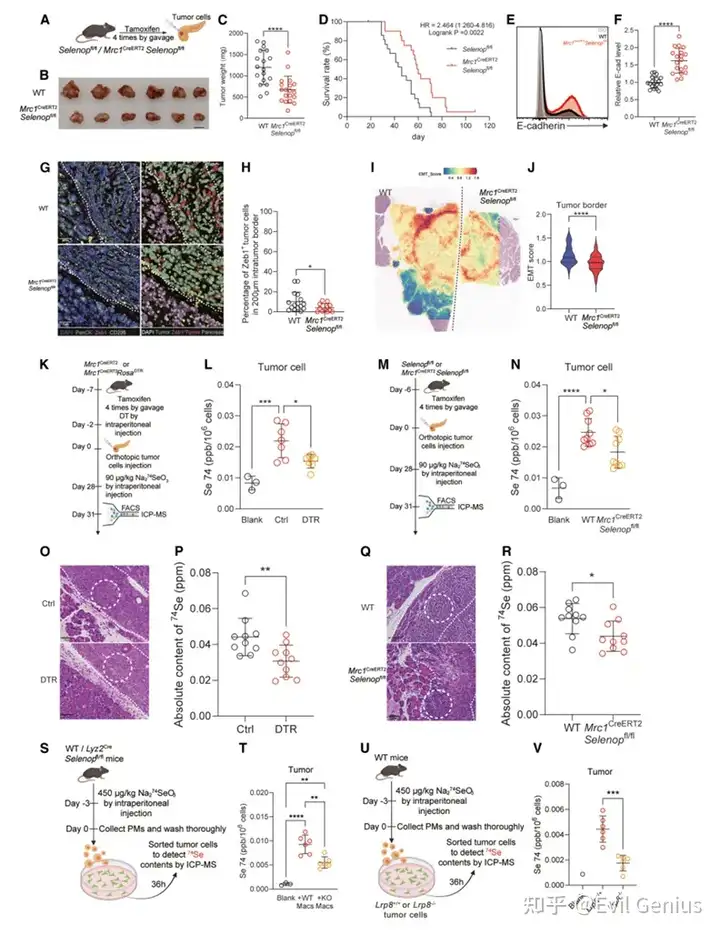
- 为了研究RTM衍生的Selenop对肿瘤EMT的影响,将Selenopfl/fl小鼠与Mrc1CreERT2小鼠杂交以条件性敲除Selenop基因在RTMs中。
- 野生型(WT)和Mrc1CreERT2Selenopfl/fl小鼠在原位肿瘤细胞注射前用他莫昔芬治疗。
- Selenop蛋白在CD206+RTMs中显著减少,但没有诱导绝对细胞数、增殖、凋亡或健康胰腺中已知促肿瘤分子的清除的显著变化,Selenop蛋白水平在胰腺组织中显著降低,但在血浆中相当,支持在RTM中Selenop的整体旁分泌效应而非系统循环Selenop。
- Mrc1CreERT2Selenopfl/fl小鼠在肿瘤植入后具有更小的肿瘤尺寸和更好的生存,与Selenopfl/flWT对照相比。
- 重要的是,来自Mrc1CreERT2Selenopfl/fl小鼠的肿瘤细胞显示E-钙粘蛋白表达增加和EMT签名降低,特别是在RTM富集的肿瘤边界区域,但没有减少增殖。
- 此外,Mrc1CreERT2Selenopfl/fl小鼠显示显著降低的转移潜力,与WT肿瘤相比。这些结果支持RTM衍生Selenop在促进肿瘤进展和肿瘤细胞EMT中的重要性。
LRP8介导的摄取
- 低密度脂蛋白受体相关蛋白8(LRP8)是一种可以介导细胞外Selenop摄取的受体。
- 为了探究LRP8介导的Selenop摄取是否与RTM衍生Selenop模型一致,生成Lrp8缺陷肿瘤细胞,可以在体外正常增殖。
- WT小鼠注射Lrp8缺陷肿瘤细胞显示显著更小的肿瘤尺寸和降低的肿瘤EMT,与对照组相比。
- 进一步评估WT和Mrc1CreERT2Selenopfl/fl小鼠中对照和Lrp8缺陷肿瘤细胞的肿瘤生长。来自其他三组的肿瘤显著小于来自WT小鼠的对照肿瘤。
- 在Lrp8缺陷肿瘤组中,WT和Mrc1CreERT2Selenopfl/fl小鼠之间的肿瘤生长差异被消除。这些结果暗示LRP8可能介导RTM衍生Selenop向肿瘤细胞的转移并促进肿瘤EMT。
体内硒转移
- 为了检查Selenop转移是否在体内从RTMs转移到肿瘤细胞,用74Se同位素在生理剂量下治疗对照、植入前RTM耗竭和Mrc1CreERT2Selenopfl/fl荷瘤小鼠,在肿瘤植入后28天。
- 使用同位素作为示踪剂,74Se水平在来自植入前RTM耗竭和Mrc1CreERT2Selenopfl/fl小鼠的肿瘤细胞中显著降低,与对照小鼠相比。
- 在RTM富集的肿瘤边界也观察到74Se密度的显著下降,支持肿瘤细胞中的硒含量由RTM衍生Selenop在体内调节的结论。
共培养验证
- 建立共培养系统使用肿瘤细胞和巨噬细胞。用Na274SeO3处理巨噬细胞并在充分洗涤后与肿瘤细胞共培养后,肿瘤细胞中的74Se信号显著高于与肿瘤细胞共培养前的基线水平,但与Selenop缺陷巨噬细胞共培养时降低。
- 支持肿瘤细胞中巨噬细胞衍生Selenop的结论。与Lrp8-/-肿瘤细胞共培养时分离的Lrp8-/-肿瘤细胞中的74^Se信号较低。
结果部分 5:RTMs通过Selenop保护肿瘤细胞免于铁死亡
铁死亡保护
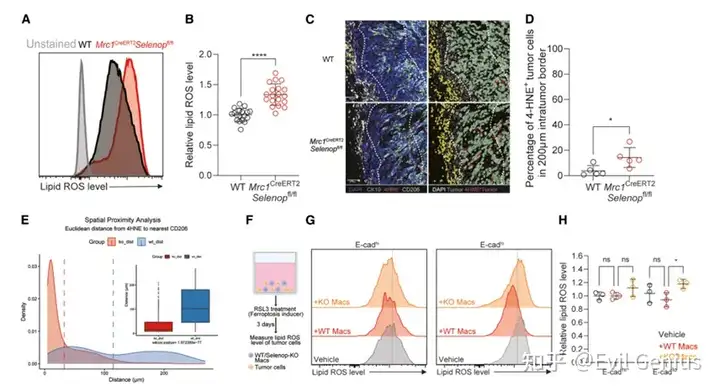
- 脂质ROS水平在来自Mrc1CreERT2Selenopfl/fl小鼠的肿瘤细胞中显著高于WT组。
- 脂质过氧化标记物4-羟基壬烯醛(4HNE)水平在肿瘤边界显著增加。
- 还测量了来自Mrc1CreERT2Selenopfl/fl小鼠肿瘤边界中4HNE+肿瘤细胞与CD206+巨噬细胞之间的距离减少,与WT小鼠相比,表明RTM衍生Selenop可能保护肿瘤细胞免于肿瘤边界处的铁死亡。
- 铁死亡签名在来自Mrc1CreERT2Selenopfl/fl小鼠的肿瘤边界区域显著上调,与WT小鼠相比,表明在缺乏RTM衍生Selenop的情况下肿瘤边界处铁死亡增加。
- 为了直接评估巨噬细胞衍生Selenop是否可以保护肿瘤细胞免于铁死亡,将肿瘤细胞与Selenop充足或Selenop缺陷的腹腔巨噬细胞共培养并用铁死亡诱导剂RSL3处理。
- E-钙粘蛋白+肿瘤细胞与Selenop充足巨噬细胞共培养显示显著降低的脂质过氧化,与Selenop缺陷巨噬细胞相比。这些结果表明巨噬细胞衍生Selenop可以在体外直接拯救间充质肿瘤细胞免于铁死亡。
- 增加的脂质过氧化也在植入前RTM耗竭组的肿瘤边界中观察到,与对照组相比。铁死亡抑制剂(liproxstatin-1)治疗显著逆转了植入前RTM耗竭的抗肿瘤效果。在自发性胰腺肿瘤伴巨噬细胞耗竭中也观察到类似结果。
- 总之,这些发现表明RTMs通过在肿瘤边界提供外源性Selenop保护间充质肿瘤细胞免于铁死亡,从而促进肿瘤EMT和向正常组织的侵袭性。
结果部分 6:RTM衍生SEPP1与人类患者中EMT介导的肿瘤进展相关
人类PDAC验证
- 基于在鼠PDAC中的发现,研究人类RTM衍生SELENOP(也称为SEPP1)是否以类似方式影响患者肿瘤细胞EMT。
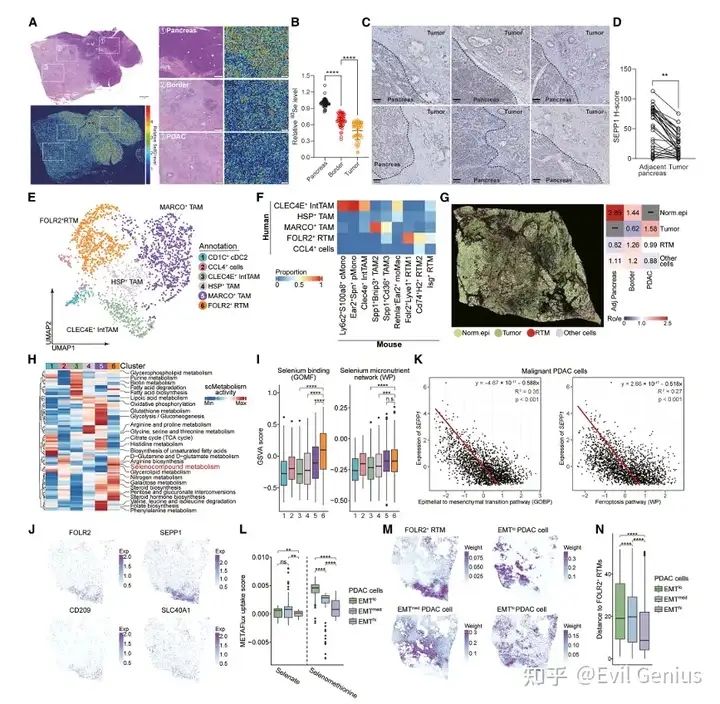
- 在人类PDAC中,观察到从相邻胰腺到肿瘤的空间硒水平和SEPP1密度显著降低。
- 在肿瘤内,SEPP1表达在E-钙粘蛋白lo区域高于E-钙粘蛋白hi区域。
- 肿瘤细胞的4HNE MFI在肿瘤核心显著高于肿瘤边界。
- 此外,CD206表达在肿瘤边界显著高于匹配的肿瘤核心区域。肿瘤边界CD206表达较高的患者预后更差。这种模式也在公共PDAC数据库中观察到。
- 这些观察表明鼠和人类PDAC中保守的RTM和SEPP1模式。
人类RTM群体
- 为了进一步研究人类PDAC中的RTM群体及其空间定位,收集了额外的PDAC患者scRNA-seq数据,识别出六个 distinct 单核细胞簇。
- 与小鼠结果和其他人类PDAC数据集一致,识别出FOLR2+RTMs,其高表达SLC40A1/SEPP1。
- 使用Xenium多组织和癌症面板(377个基因)的空间转录组 profiling 进一步确认RTMs富集在肿瘤边界。
- scMetabolism和基因集变异分析(GSVA)揭示FOLR2+RTMs表现出最高的硒化合物代谢活性和与硒结合和硒微量营养素网络相关的上调通路。
- 由于SEPP1未包含在Xenium基因面板中,使用基于测序的Stereo-seq获得全转录组数据,验证FOLR2+RTM标记基因(包括FOLR2、SEPP1、CD209和SLC40A1)在肿瘤边界共表达。
- 这些发现表明FOLR2+RTMs存在于人类PDAC的肿瘤边界,并显示SEPP1的高表达水平以及增加的硒代谢活性。
EMT与SEPP1相关性
- 计算scRNA-seq数据中所有恶性细胞的EMT评分,将其分为三组:EMThi、EMTmed和EMTlo。
- 与小鼠数据一致,人类PDAC细胞中SEPP1表达与EMT和铁死亡通路活性负相关,也在其他肿瘤类型中。
- 代谢通量分析揭示硒酸盐和硒代蛋氨酸的摄取能力在间充质恶性细胞中显著降低。这意味着人类间充质PDAC细胞可能依赖外部SEPP1作为对抗铁死亡的拯救机制。
- 使用稳健细胞类型分解(RCTD)估计Stereo-seq数据中每种细胞类型的比例,发现FOLR2+RTMs在空间上更接近EMThi细胞而非EMTmed和EMTlo PDAC细胞。
- 总之,数据表明在人类PDAC中,RTMs可能通过在肿瘤边界提供SEPP1保护间充质肿瘤细胞免于铁死亡。
讨论
核心发现
- 本研究定义了胰腺癌中RTMs的起源、异质性和功能。
- 使用谱系追踪,识别出健康和PDAC中保守的RTM签名,并聚焦于植入前时间窗口,此时RTMs在MDMs成为数量主导之前仍然突出。
- 在这个窗口期RTM耗竭减缓PDAC进展,支持在肿瘤侵袭和EMT相关进展中的作用,而非在从良性到恶性疾病的遗传转变中。
- 空间转录组学显示RTMs在肿瘤外周积累,RTM衍生Selenop保护肿瘤细胞免于铁死亡并支持EMT。
- 总之,这些发现支持一个模型,其中RTM衍生Selenop向间充质肿瘤细胞提供外源性硒,限制铁死亡并促进侵袭。
巨噬细胞功能
- 起源 distinct 的巨噬细胞在肿瘤中发挥阶段和空间限制的功能。
- 在肺和胰腺腺癌中,RTMs贡献于肿瘤相关生态位,而肺泡巨噬细胞促进EMT、调节性T细胞激活和组织重塑在非小细胞肺癌中。
- RTMs通常重新分布到肿瘤外周,并在肿瘤核心逐渐被MDMs替代。
- 跨癌症浸润的MDMs经常获得触发受体在髓系细胞上表达2(TREM2)程序,也在慢性炎症和阿尔茨海默病中看到,并且在PDAC中描述了空间 distinct 的MDM亚群。
- 相比之下,RTMs保留与组织发育和伤口修复相关的功能,可能被肿瘤劫持以通过Selenop分泌支持EMT。
- EMT可以促进适应性肿瘤状态的出现,数据揭示上皮Selenop表达与EMT活动之间的反向关系,表明EMT相关程序可能抑制Selenop表达。
- RTM衍生Selenop也可能呼应发育程序,因为RTMs和硒在胚胎发生中都是必需的。这种现象类似于非恶性细胞中的癌胎重编程,其中胎儿样程序在TME中重新出现。
- 研究发现表明胎儿样RTMs可能不仅塑造免疫抑制微环境,还通过分泌必需分子直接支持肿瘤存活。因此,肿瘤可能劫持发育和修复相关的巨噬细胞程序以创建营养支持生态位,维持侵袭性癌症状态。
EMT与铁死亡的联系
- EMT和铁死亡通过细胞可塑性、脂质重塑和氧化还原控制相联系。
- 在EMT过程中,E-钙粘蛋白丢失和EMT驱动因子如ZEB1可以激活YAP-ACSL4信号,重塑磷脂,并使膜富含易过氧化的脂质,而GPX4中心的防御、胱氨酸代谢和脂质去饱和通路缓冲氧化应激。
- 因此,EMT促进侵袭和适应,同时创造对铁死亡的条件性脆弱性,其结果取决于脂质过氧化物解毒是否保持完整。
- 研究识别出Selenop作为外部巨噬细胞衍生因子缓冲这种脆弱性。RTM衍生Selenop不是边界相关EMT的唯一驱动因素,因为当Selenop减少时EMT特征持续存在,并且可能由炎症线索、缺氧、细胞外基质重塑和肿瘤内在EMT程序维持。
- 尽管如此,靶向RTMs或Selenop可能在时间定义的TME背景下暴露EMThigh肿瘤细胞于铁死亡。
总结
- 研究识别出RTMs作为PDAC中的促肿瘤巨噬细胞谱系,RTM衍生Selenop作为EMT相关铁死亡抵抗的关键介质。
- 更广泛地说,TME中的细胞外支持不仅由 bulk 营养可用性塑造,还由细胞状态特异性依赖和生态位定义的免疫回路塑造。
局限性
- 模型限制:原位模型发展迅速,不是研究EMT全时间谱的理想模型。因此,早期或初始指的是微环境定义的窗口而非癌前PDAC的最早遗传步骤。由于p53突变在PDAC患者中通常是晚期事件,在没有Trp53扰动的自发性模型中的验证将很重要。
- Mrc1靶向的脱靶效应:尽管Mrc1CreERT2RosaTdT没有标记胰腺内皮细胞,但Mrc1驱动的靶向的胰腺外效应仍然是注意事项。
- 膳食硒的作用:RTM-Selenop轴中膳食硒的作用仍未解决。系统性硒耗竭难以测试,因为硒具有狭窄的缺乏-毒性窗口,长期耗竭可能引入系统性混杂因素。
- SEPP1的临床意义:SEPP1的临床意义仍未解决,因为肿瘤边界SEPP1可能反映混合细胞来源和具有非等价生物效应的不同亚型,尽管SEPP1表达在多种肿瘤类型中与EMT负相关。
- 其他硒蛋白的冗余:尽管其他硒蛋白在转录水平上没有稳健诱导,但不能排除蛋白质或活性水平的冗余。未来研究将需要更严格地控制系统性硒状态和更高的空间、亚型特异性和功能分辨率。
方法
小鼠
- 小鼠在SPF条件下饲养于上海交通大学医学院动物设施。
- 所有涉及动物的程序由上海交通大学医学院机构动物护理和使用委员会(IACUC)审查和批准。
- 除非另有说明,体内实验使用年龄和性别匹配的C57BL/6背景小鼠。
- Ms4a3Cre和Ms4a3CreERT2小鼠由研究团队生成并先前描述。
- Mrc1CreERT2小鼠在上海模式生物中心生成。
- Selenopflox小鼠从Cyagen购买。Selenopflox小鼠和Lyz2Cre小鼠杂交生成Lyz2CreSelenopflox小鼠。
细胞系
- 鼠源KPC1199细胞系源自自发性PDAC小鼠模型KPC(LSL-KrasG12D/+; Trp53R172H/+, Pdx1Cre)在C57BL/6遗传背景。
- 荧光素酶稳定的胰腺导管腺癌FC1242L细胞系源自LSL-KrasG12D; LSL-Trp53+/R172H; Pdx1Cre(KPC)小鼠。FC1242L细胞系用于原位肿瘤注射。KPC1199细胞系用于体外细胞共培养。
人类临床样本获取
- 人类PDAC标本和相关临床数据从上海交通大学医学院瑞金医院获得,经瑞金医院伦理委员会批准。
敲除细胞系生成
- 对于CRISPR-Cas9敲除细胞系,合成靶向小鼠Zeb1、小鼠Selenop和小鼠Lrp8的sgRNAs并克隆到GV708载体中。
- 构建体用Lipofectamine 3000引入肿瘤细胞,成功转染的细胞通过嘌呤霉素选择富集。通过有限稀释获得克隆系。通过Sanger测序和流式细胞术评估蛋白质表达验证基因破坏。
小鼠治疗和RTM耗竭
- 对于谱系标记,Mrc1CreERT2RosaTdT小鼠通过口服灌胃接受他莫昔芬连续四天,每剂含1.75 mg在100 μL中,最终剂量在肿瘤注射前三天。
- 为了耗竭RTMs,Mrc1CreERT2RosaDTR小鼠如上接受他莫昔芬,然后在肿瘤注射前两天或后10天通过腹腔注射接受500 ng白喉毒素在200 μL PBS中。
- Liproxstatin-1通过腹腔注射以10 mg/kg给药,从肿瘤植入后第10天开始每周两次直至收获。
- 对于KPC小鼠中的RTM耗竭,6周龄动物在第1天静脉接受1 mg抗小鼠CSF1抗体,随后在第2天腹腔接受200 μL氯膦酸盐脂质体。
肿瘤细胞原位注射
- 对于原位植入,2.5×105肿瘤细胞制备在50 μL含30% Matrigel的冰冷PBS中,在麻醉下注射到胰腺。
体内生物发光发射成像
- 荧光素酶稳定肿瘤细胞植入以进行肿瘤生长的纵向监测。在注射后第7、14、21和28天,小鼠用异氟烷麻醉并在腹腔注射D-荧光素(150 mg/kg)8分钟后使用IVIS Spectrum系统成像。
细胞分离
- 胰腺切成小块并用0.2 mg/mL IV型胶原酶和0.05 mg/mL DNase I在含10% FBS的RPMI 1640中37°C消化30分钟。
- 消化后,组织悬液通过反复通过1.2 mm内径针头机械分散。匀浆细胞通过70 μm孔径细胞筛过滤并用MACS缓冲液洗涤两次。红细胞在ACK缓冲液中裂解三分钟。
流式细胞术和细胞分选
- 从胰腺或肿瘤组织生成的单细胞悬液进行流式细胞术染色和分析。
- 样品在Cytek Aurora光谱流式细胞仪上运行,所得FCS文件在FlowJo中分析。荧光标记群体在BD FACSAria III上纯化,DAPI用于排除非活力细胞。
免疫荧光和分析
- 新鲜收集的组织在1%多聚甲醛(PFA)中浸泡过夜固定,随后在30%蔗糖中冷冻保护。
- 样品嵌入OCT化合物并使用Leica冷冻切片机切片为20 μm。荧光图像使用SLIDEVIEW VS200载玻片扫描仪或FLUOVIEW FV3000共聚焦显微镜获取。
多重免疫组化(mIHC)
- 组织收获并在4% PFA中固定过夜,梯度酒精脱水,二甲苯透明,石蜡包埋。
- mIHC测定在5 μm厚切片上使用Tyramide Signal Amplification(TSA)七色试剂盒按照制造商说明进行。
- 图像使用SLIDEVIEW VS200捕获,使用QuPath(v.0.6.0)分析。
循环多重TSA(CmTSA)
- 组织收获并在4% PFA中固定过夜,梯度酒精脱水,二甲苯透明,石蜡包埋。
- FFPE组织样品切成5 μm厚切片并在二甲苯中脱蜡,通过梯度乙醇再水化,并使用柠檬酸盐缓冲液(pH 6.0)在95°C下热诱导抗原修复30分钟。
- 抗体标记使用IRISKit HyperView mTSA Kit进行。图像配准使用Fiji实现。
mIHC分析
- mIHC图像的数字化定量使用QuPath进行。
- 原始数据预处理用于背景减除和通道对齐。细胞分割使用QuPath-Cellpose扩展执行,利用cpsam(Cellpose-SAM)预训练模型基于DAPI(核)和膜/细胞质标记物稳健识别细胞边界。
- 细胞通过基于个体标记物强度阈值的分层布尔逻辑进行表型分型。对于空间表征,手动注释肿瘤边界以定义两个200 μm(小鼠)或500 μm(人类)区域:肿瘤内和肿瘤周围。
IHC定量(H-score)
- 对于人类PDAC IHC染色,全切片图像使用QuPath分析。组织区域基于形态学特征分类为"肿瘤"和"相邻胰腺"。H-score使用内置"阳性细胞检测"命令计算。
细胞间距离定量
- 为了量化4HNE+和CD206+细胞之间的空间关联,首先从数字化图像中提取其质心坐标。
- 对于每个4HNE+细胞,通过使用K-最近邻(KNN)算法(k=1)计算欧几里得距离确定其最近CD206+邻居的邻近性。
体外细胞共培养
- 1×10⁵胰腺肿瘤细胞和4×10⁴来自Lyz2CreSelenopfl/fl或野生型小鼠的腹腔巨噬细胞在48孔板中共培养3天,在含5 nM RSL3的培养基中。
- 用BODIPY 581/591 C11染色后,通过流式细胞术检测肿瘤细胞的脂质ROS水平。
Na274SeO3合成
- 1.6 mg 74Se粉末溶解在20 μL 70% HNO3中,加入180 μL去离子水制成108.2 mmol/L H274SeO3溶液。
- 使用10 M NaOH溶液将pH调节至10.5,通过加入去离子水将体积增加至800 μL,使74Se浓度为27.1 mmol/L。储备液储存在4°C。
体外74Se转移测定
- 小鼠腹腔注射450 μg/kg Na274SeO3。三天后,收集腹腔巨噬细胞,彻底洗涤,以5×10⁵细胞/孔接种在6孔板中,然后与肿瘤细胞共培养36小时。
- CD45+CD11b+F4/80+巨噬细胞和CD45-肿瘤细胞通过FACS分选,通过电感耦合等离子体质谱(ICP-MS)测量74Se含量。
体内74Se转移测定
- 在原位肿瘤植入后第28天,小鼠接受单次腹腔注射90 μg/kg Na274SeO3。
- 三天后,通过FACS分选肿瘤细胞并通过ICP-MS测量74Se含量。
电感耦合等离子体质谱
- 通过FACS分离细胞群体,彻底洗涤细胞,然后用100 μL双蒸水裂解。
- 将100 μL细胞裂解物的准确体积转移到反应离心管中,加入100 μL硝酸(68%)。混合物在水浴中100°C加热一小时,然后冷却并用双蒸水稀释至最终体积1 mL。
- 使用PerkinElmer ICP-MS测量细胞中74Se浓度。
激光烧蚀电感耦合等离子体质谱(LA-ICP-MS)
- 小鼠和人类肿瘤组织石蜡包埋,切成10 μm厚切片,脱蜡。
- 使用GenesisBIO飞秒激光烧蚀系统和四极杆ICP-MS仪器分析每个组织切片感兴趣区域(ROIs)中硒(Se)的分布。
- 小鼠中74Se硒分布和人类肿瘤切片中80硒分布通过LA-ICP-MS分析。测量元素强度谱转换为2D图并使用Iolite V4进一步处理。
单细胞RNA测序
- 肿瘤组织在含10% FBS的RPMI-1640中切成1-2 mm3小块。
- 这些小块使用肿瘤解离试剂盒在gentleMACS Octo Dissociator中37°C消化一小时,严格按照制造商说明。
- 解离细胞通过70 μm孔径SmartStrainer过滤,并在冰上用红细胞裂解溶液处理5-10分钟以去除红细胞。细胞用PBS洗涤两次并以300×g离心五分钟。
临床PDAC样品的空间转录组学
- Xenium In Situ空间转录组 profiling:为了评估FFPE块内的组织质量,进行H&E和DAPI染色。组织样品还通过测量DV200确定RNA完整性。FFPE切片使用制造商推荐的FFPE方案处理用于Xenium In Situ分析。
- Stereo-seq样品制备和处理:新鲜组织在切除后30分钟内用无菌无纺布干燥并嵌入OCT。冷冻切片使用LEICA CM1950冷冻切片机在-20°C切成10 μm厚度。
数据分析
- Bulk RNA-seq数据分析:Bulk RNA-seq数据在TPM水平定量,随后使用preprocessCore R包进行分位数归一化。使用ComBat校正不同组织之间的批次效应。
- scRNA-seq数据分析:来自Ms4a3CreERT2RosaTdT的scRNA-seq数据首先按组织来源分层,随后与来自可诱导自发性KC小鼠的scRNA-seq数据进行典型相关分析-based整合。聚类使用top 15主成分(PCs)和0.6的分辨率进行。
- 基因集富集分析:使用LIMMA包计算基因表达差异,调整P值<0.05的基因定义为DEGs。GO通路富集在R中使用clusterProfiler的gseGO函数进行。基因集变异分析使用GSVA包实现。
- 差异丰度分析:使用观察与预期细胞数比率(Ro/e)测试治疗组之间细胞丰度差异。
- 代谢分析:scMetabolism用于在单细胞分辨率量化小鼠和人类巨噬细胞的代谢活动。使用METAFlux计算人类PDAC TME中硒酸盐和硒代蛋氨酸的通量。
- 空间转录组学数据分析:10x Visium数据使用Seurat R包分析,使用SCTransform进行数据归一化和特征选择。Xenium数据使用LoadXenium加载后过滤少于15个计数和十个基因的细胞。Stereo-seq分析中表达矩阵分箱为非重叠100×100或10×10 DNB窗口。
- 生存分析:PDAC患者的总生存(OS)分析使用Kaplan-Meier Plotter在线数据库进行。
统计
- 统计分析使用GraphPad Prism 10进行,除非另有说明。数据表示为平均值±SD,除非另有说明。
- 对于两组比较,正态分布数据集使用双尾非配对Student's t检验分析,而非参数数据集使用Mann-Whitney U检验评估。配对数据使用配对t检验分析。分类变量使用Fisher精确检验分析。
- 生存曲线使用Kaplan-Meier方法生成并通过log-rank检验比较。统计显著性定义为p<0.05,p<0.01,**p<0.001,****p<0.0001;ns,不显著(p>0.05)。
关键结论
- RTMs在肿瘤边界富集:RTMs优先定位于PDAC肿瘤边界,在那里它们促进EMT、肿瘤生长和转移。
- Selenop作为关键介质:RTMs通过LRP8依赖性摄取将硒转运蛋白Selenop转移给EMT肿瘤细胞,增加肿瘤细胞硒可用性,限制脂质过氧化,并保护EMT肿瘤细胞免于铁死亡。
- 遗传验证:RTM特异性Selenop缺失或肿瘤细胞Lrp8破坏减少了EMT和肿瘤进展,而铁死亡抑制逆转了RTM耗竭的效果。
- 人类PDAC保守性:人类PDAC显示边界富集的SEPP1⁺RTMs(FOLR2⁺)靠近EMT肿瘤细胞,提示一种保守的巨噬细胞来源的硒生态位支持侵袭性肿瘤状态。
- 治疗意义:靶向RTMs或其分泌因子(如Selenop)可能代表PDAC治疗的新策略,通过暴露EMThigh肿瘤细胞于铁死亡。
- 概念性贡献:TME中的细胞外支持不仅由 bulk 营养可用性塑造,还由细胞状态特异性依赖和生态位定义的免疫回路塑造。肿瘤可能劫持发育和修复相关的巨噬细胞程序以创建营养支持生态位,维持侵袭性癌症状态。
生活很好,有你更好。
原创声明:本文系作者授权腾讯云开发者社区发表,未经许可,不得转载。
如有侵权,请联系 cloudcommunity@tencent.com 删除。
目录
腾讯云开发者

Copyright © 2013 - 2026 Tencent Cloud. All Rights Reserved. 腾讯云 版权所有
深圳市腾讯计算机系统有限公司 ICP备案/许可证号:粤B2-20090059  粤公网安备44030502008569号
腾讯云计算(北京)有限责任公司 京ICP证150476号 | 京ICP备11018762号