顶刊分享(xenium)--跨脑部疾病的转录组脆弱性单细胞图谱
原创
顶刊分享(xenium)--跨脑部疾病的转录组脆弱性单细胞图谱
原创
追风少年i
发布于 2026-10-05 17:52:35
发布于 2026-10-05 17:52:35
作者,Evil Genius
今天我们分享文献
摘要
神经退行性和神经精神疾病给社会带来了巨大的公共卫生负担。然而,对这些高度复杂病症的分子机制的理解仍然有限。为了深入洞察不同脑部疾病的病因,研究团队使用来自1,494名独特供体的标本,构建了人类背外侧前额叶皮层的群体规模单细胞转录组图谱,包含超过630万个单细胞核。该队列包括神经典型对照,以及受八种常见和复杂脑部疾病影响的供体:阿尔茨海默病(AD)、弥漫性路易体病(DLBD)、血管性痴呆(Vas)、帕金森病(PD)、tau蛋白病、额颞叶痴呆、精神分裂症和双相情感障碍。研究表明,个体间变异占基因表达变异的很大一部分。通过比较跨疾病的转录变异,揭示了富集于基本细胞功能(如mRNA加工和蛋白质定位)的普遍签名。在扣除这些跨疾病签名后,研究显示AD、DLBD、Vas和PD之间存在更强的遗传和转录一致性。此外,研究表征了不同AD表型之间的转录变异,与健康衰老中观察到的不同,揭示AD更严重个体中神经元丰度减少,伴随免疫和血管细胞群体增加。探索常伴随AD的神经精神症状(NPS),发现深层兴奋性神经元丰度增加与广泛的NPS相关。通过构建捕获AD进展的转录组轨迹,研究揭示了AD早期和晚期阶段的细胞类型特异性反应。该疾病图谱提供了神经退行性和神经精神疾病中转录组景观的视角,揭示了涉及神经-免疫-血管系统的共享和 distinct 过程,并识别了治疗干预的潜在靶点。
引言
- 人脑是由数十亿功能多样的细胞组成的高度复杂器官。在病理应激下,细胞和分子反应通常是 convoluted 和 contextual 的,因此理解其在疾病中的功能障碍具有挑战性。
- 单细胞方法有助于分析单个细胞内发生的分子变化,在理解复杂组织内不同细胞类型之间的相互作用以及这些细胞在各种疾病背景中的作用方面特别有用。
- 在AD中,对细胞异质性的全面暴露仍然有限。
- 构建大规模单细胞分辨率疾病图谱为理解细胞水平分子反应和估计脑转录组中群体水平变异提供了机会。大样本量提供了足够的统计功效来建立稳健的基线条件,并充分捕获疾病病理的全谱。
- 利用跨疾病图谱,研究已揭示主要精神疾病中基因表达扰动的共享和 distinct 模式,以及导致分子趋同的共享遗传因素。因此,共同表征共享的转录组脆弱性和病理生理学对早期治疗和有效疗法的开发具有重要意义。
- 研究团队介绍了PsychAD队列,由1,494名独特脑供体组成,包括神经典型对照和受各种神经退行性和神经精神疾病(NPDs)影响的个体。
- 聚焦于背外侧前额叶皮层(DLPFC),生成了包含超过630万个细胞核的单核RNA测序(snRNA-seq)数据集,代表27种 distinct 细胞亚类。
- 该数据集具有足够的功效来识别多个性状的分子签名,同时考虑个体变异。
- 识别共享转录组脆弱性,定义为跨疾病基因表达变化的重叠模式,指向共同致病机制。这些共享签名为超越传统疾病边界的早期干预潜在分子机制提供了见解。
- 此外,发现疾病间共享转录组脆弱性与遗传共遗传力一致,表明常见遗传风险因素部分驱动共享基因表达变化。
- 使用tau病理和临床痴呆状态对AD轨迹进行深度表型分析,提示免疫和脑血管功能障碍之间的潜在联系。
- 总之,研究为探索多种神经退行性疾病和NPDs中脑功能和功能障碍的细胞和分子机制提供了丰富全面的资源。
PsychAD队列
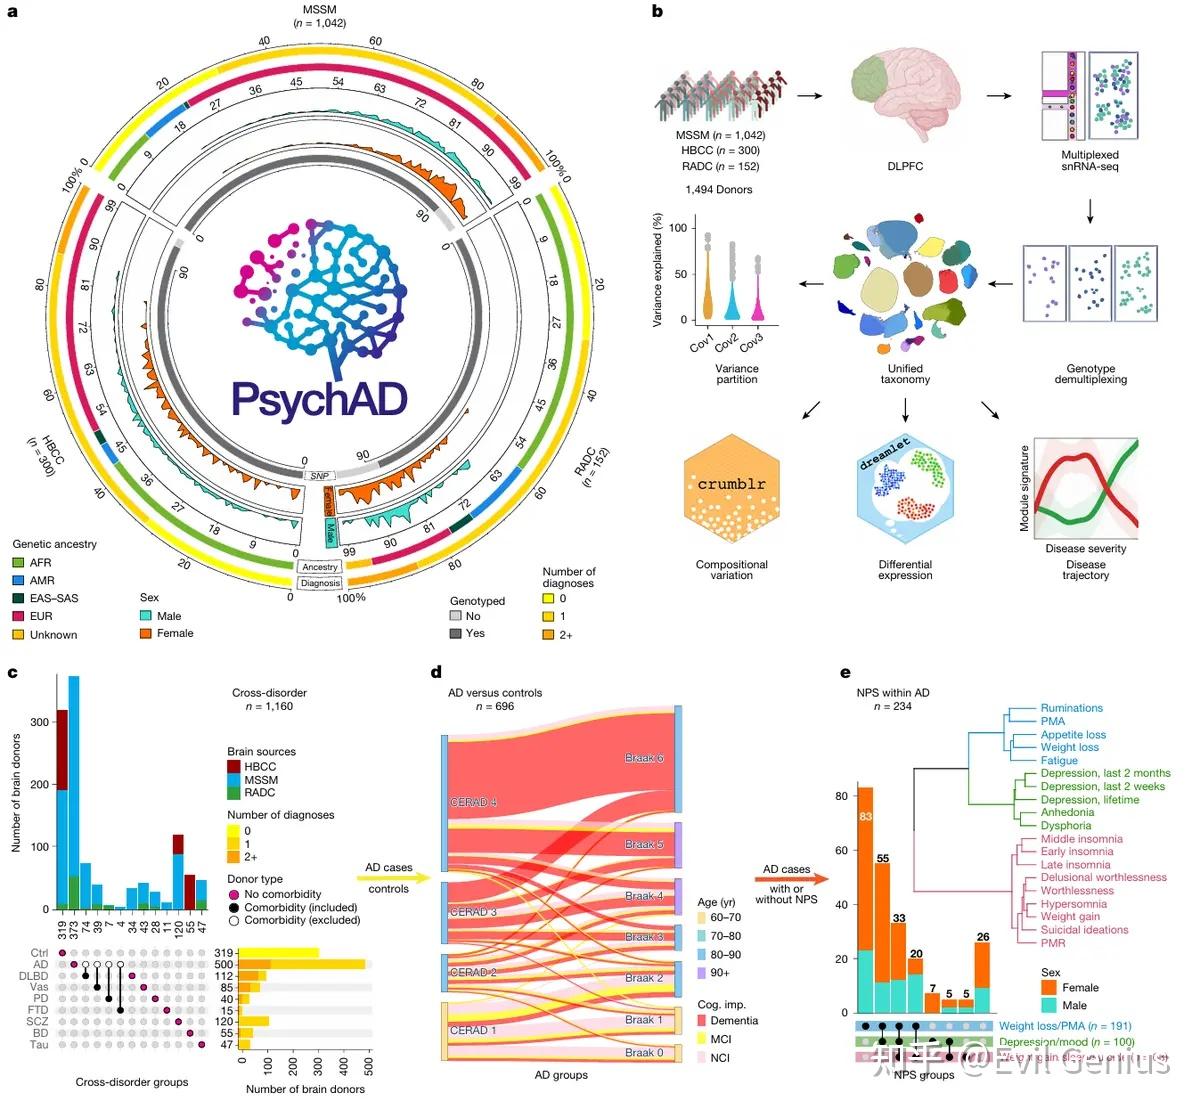
- PsychAD队列由1,494名独特供体组成。
- 脑组织标本从三个来源获得:1,042名来自Mount Sinai NIH Neurobiobank(MSSM),300名来自Human Brain Collection Core(HBCC),152名来自Rush Alzheimer's Disease Center(RADC)。
- 队列涵盖0至108岁的整个出生后生命周期,男性和女性个体数量大致相等(男性n=723,女性n=771),代表多样疾病表型,包括AD、DLBD、Vas、tau蛋白病(Tau)、额颞叶痴呆(FTD)、PD、精神分裂症(SCZ)和双相情感障碍(BD)。
- 队列涵盖多样遗传背景,超过30%的供体(n=509)为非欧洲(EUR)祖先。
- 简化了数据的统一处理以及临床和技术元数据的协调。
- 冷冻脑标本随机化并以六个为一批处理。每个样本的等量细胞核汇集在一起,每个pool处理两次独立的snRNA-seq反应以生成技术重复。
- 质量控制后,最终数据集包含6,320,459个细胞核。
- 为表征跨多种神经精神 and 神经退行性疾病(NDDs)的转录脆弱性,分析分为三层:
- 第一,进行跨疾病分析。为了确保分析功效和可解释性,聚焦于八种代表性良好的疾病,具有清晰的病理定义和足够的供体代表性,包括病例和对照的平衡数量。具体而言,使用1,160名供体的子集,年龄至少17岁,共病最小,针对六种NDDs(AD、DLBD、Vas、Tau、FTD和PD)和两种NPDs(SCZ和BD)。为了估计转录组脆弱性的共享,将受NDDs和NPDs影响的供体与319名神经典型对照的基线进行比较。
- 第二层分析聚焦于基于病理和认知障碍测量的AD进展阶段,使用696名个体的子集。为了识别疾病发作和疾病轨迹中的细胞类型特异性作用,比较了AD脑的两个特征性神经病理异常:使用CERAD斑块密度评分测量的淀粉样蛋白-β(Aβ)斑块积累,和使用Braak分期测量的tau-based神经原纤维缠结(NFT)病理,以及认知障碍。
- 第三层,调查了234名AD个体中的NPSs。NPSs是AD的核心特征,在痴呆患者中常见。基于共现估计,将NPSs广泛分为三组:(1) 抑郁或情绪相关,(2) 体重减轻或精神运动性激越(PMA),和(3) 体重增加、失眠或自杀意念,共享导致患病率随疾病严重程度增加的分子机制。
人类DLPFC的统一细胞分类法
- 为了在疾病背景下理解异质性人类皮层组织,需要一个对衰老、疾病表型和各种采样和技术偏差具有稳健性的细胞类型分类法。
- 在统一计算处理、质量控制和批次归一化代表1,494个解剖的snRNA-seq文库(重复处理)后,使用灵长类DLPFC和人类初级运动皮层的细胞分类法作为基线参考注释人类DLPFC的细胞类型。
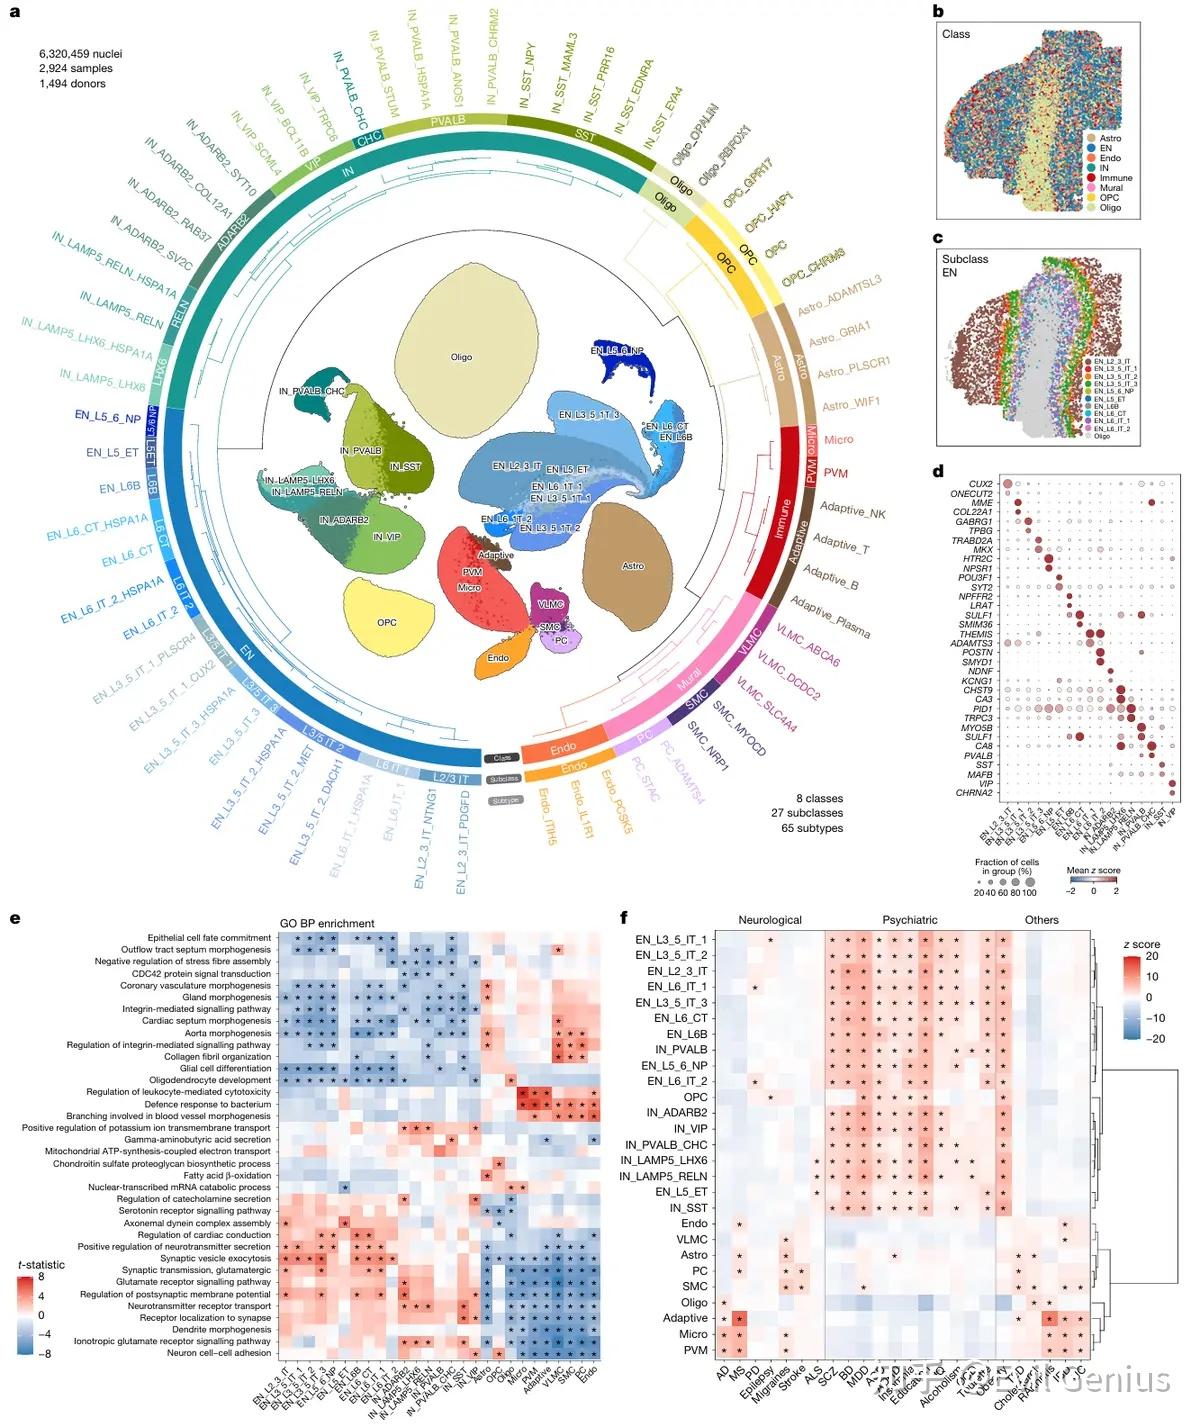
- 所得分类法组织为三个层级,识别八个广泛细胞类别、27个亚类和65个功能 distinct 亚型。每个注释层级代表聚类树状图中的一个切片。
- 在顶层,类别水平定义八种主要细胞类型,包括两种广泛神经元细胞类型:谷氨酸能兴奋性(EN)和GABA能抑制性神经元(IN);三种胶质细胞:星形胶质细胞(Astro)、少突胶质细胞(Oligo)和少突胶质细胞祖细胞(OPCs);以及三种非神经元细胞类型:免疫细胞(Immune)、壁细胞和血管细胞(Mural)和内皮细胞(Endo)。
- 后续水平,即亚类和亚型,通过使用与特定细胞类型相关的新变量基因集迭代重新聚类细胞子集-基因矩阵来衍生。
- 细胞分类法在所有三个脑来源中一致且良好代表。最精细水平的亚型注释是稳健的,对供体和技术变量不变。
- 神经元细胞占所有细胞的38.4%(EN 23.0%和IN 15.4%),少突胶质细胞是下一个最丰富的,占36.1%。主要细胞类型和亚型与先前的DLPFC细胞分类法匹配良好。
- 亚类水平将EN和IN类别分别区分为10个和7个亚类。
- 不同类型的神经元,特别是ENs,组织成六个水平层(L1-L6),在细胞结构和功能上都是 distinct 的。原位空间转录组数据用于确认EN亚类在空间上是 distinct 的,并发现于各自的新皮层。EN亚类由其层状组织(L2-6)和轴突投射特征(intratelencephalic (IT)、extratelencephalic (ET)、near projecting (NP)、corticothalamic (CT)和L6B)表示。
- IN亚类由其特征标记基因确定:LAMP5⁺LHX6⁺ ivy细胞(IN LAMP5 LHX6)、LAMP5⁺RELN⁺ neurogliaform细胞(IN LAMP5 RELN)、parvalbumin⁺ basket细胞(IN PVALB)、parvalbumin⁺chandelier细胞(IN PVALB_CHC)、somatostatin⁺ Martinotti和non-Martinotti细胞(IN SST)、VIP⁺抑制性神经元(IN VIP)和ADARB2⁺小鼠Sncg⁺抑制性神经元的同源物(IN ADARB2)。
- 与先前报道一致,IN亚类未显示与EN亚类相同程度的层状组织。对粗略定义层状区域内每个亚类细胞核空间密度的更仔细检查揭示IN分布跨皮层不均匀。例如,观察到ADARB2⁺和VIP⁺中间神经元偏好外层皮层,而两种PVALB⁺中间神经元亚类分布在L2-6层,偏倚不太明显。值得注意的是,观察到SST⁺抑制性神经元亚型具有 distinct 的层特异性富集模式。一些先前注释的罕见抑制性神经元类型,如SST⁺NPY⁺或SST⁺HGF⁺,在亚类水平未区分,但在亚型水平被识别。
- 正如预期,神经元亚类表现出与非神经元 distinct 的功能特征。ENs富集与突触囊泡priming和神经递质分泌相关的通路,而INs富集与受体信号和离子转运相关的功能。免疫细胞类型显示与细胞毒性免疫反应相关功能的独特富集,而壁细胞参与血管形态发生。
- 已显示细胞类型在介导疾病风险中具有差异。因此,使用单细胞疾病相关性评分(scDRS)进一步用疾病全基因组关联研究(GWAS)注释细胞类型,发现神经疾病,包括NDDs如AD和神经免疫疾病如MS,主要涉及免疫和胶质细胞类型,而精神疾病主要与神经元相关。
转录组变异的来源
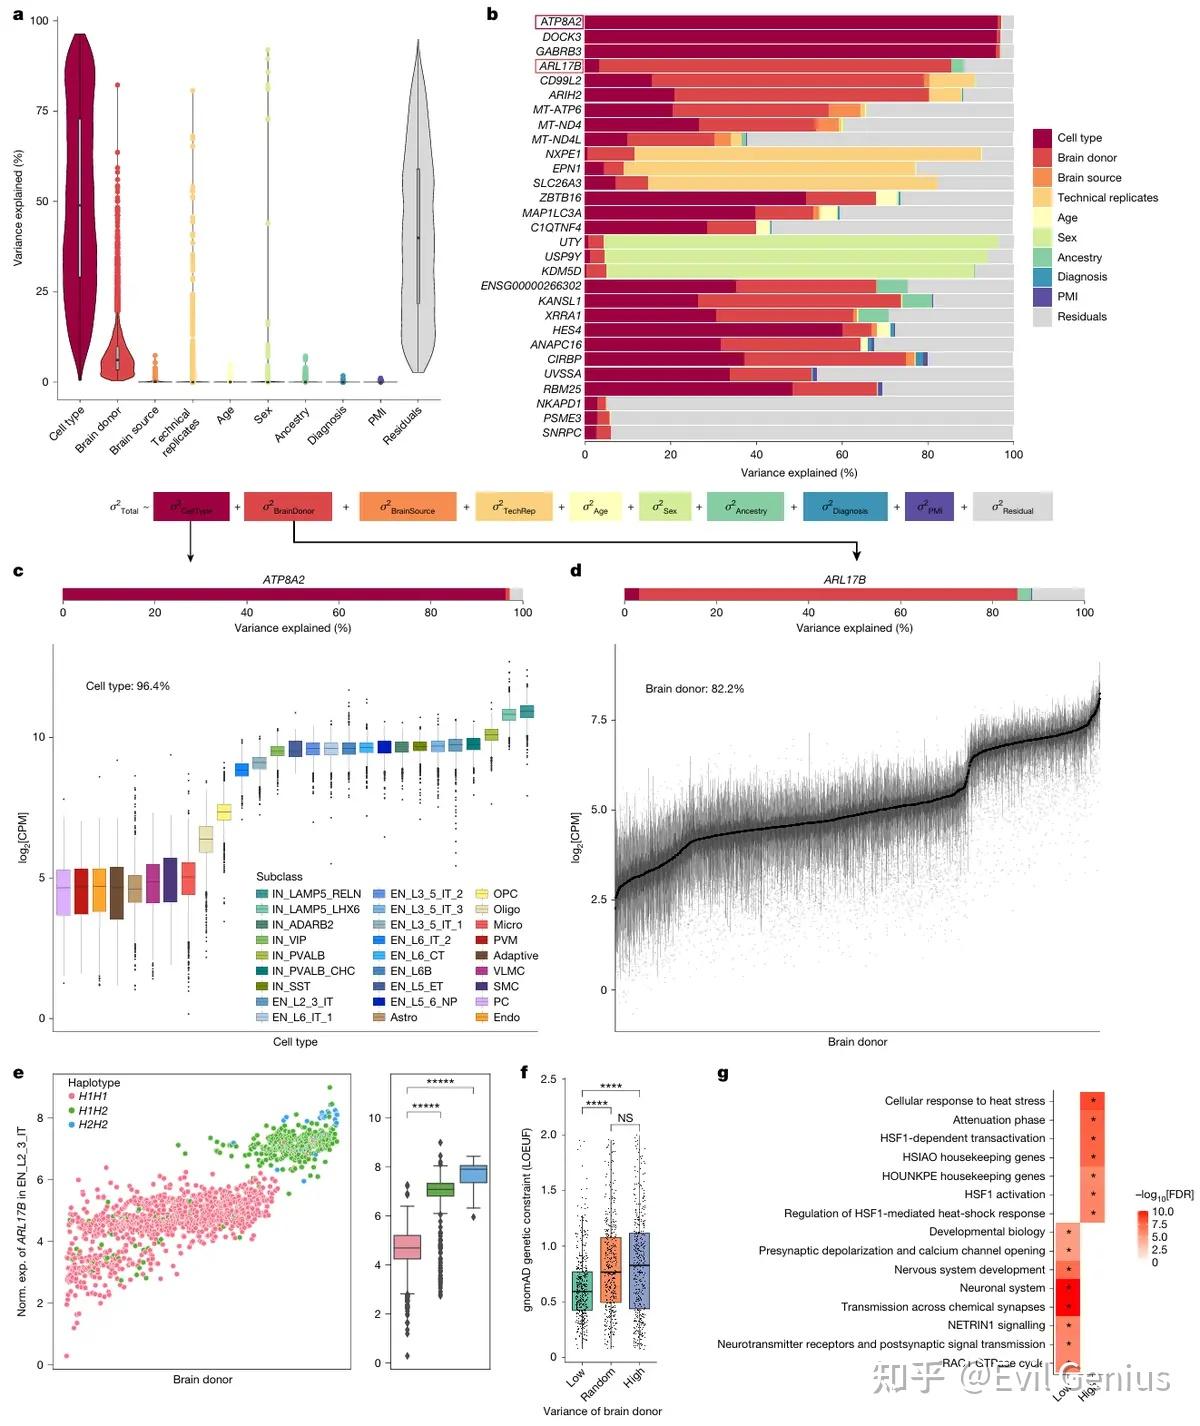
- 转录组变异受个体间遗传差异、表型和技术因素的影响。为了理解队列中整体转录组变异的决定因素,使用群体规模snRNA-seq数据按细胞变量(包括细胞类型和线粒体和核糖体基因比例)、供体水平变量(包括个体ID、年龄、性别、遗传祖先和诊断)和技术变量(包括组织标本来源、死后间隔、技术重复和测序深度)分区基因表达方差。
- 在所有基因中,平均50.5%的总表达方差可归因于细胞类型变异,而个体间变异解释7.5%,未解释的残差变异占41.1%。其余变量平均解释不到1%的总方差。
- 优先考虑跨变量表达变异最高的基因。在具有高细胞类型变异的基因中,大多数在神经元和非神经元细胞类型之间差异表达。
- 正如预期,跨性别变异的基因位于性染色体上,而跨组织来源高变异的基因主要是线粒体基因,可能由于各自组织来源的解剖和处理中生理和环境因素的技术差异。
- 跨诊断高变异的基因涉及应激反应和管家功能。顶部基因,冷诱导RNA结合蛋白(CIRBP),响应低温应激并保护细胞免受缺氧诱导的神经毒性,其表达已显示与癌症患者生存负相关。注意,除了跨诊断的变异外,CIRBP还具有最高的PMI变异。由于这种方法检查跨细胞类型共享的表达变异,诊断解释的低方差比例表明需要细胞类型特异性分析。
- 值得注意的是,观察到个体间差异解释了ADP核糖基化因子样GTP酶17B(ARL17B)基因表达的82.2%变异。
- 几个相邻基因,如KAT8调节NSL复合体亚基1(KANSL1)和ARL17A(ARL17B的旁系同源物),也具有高个体间变异。
- ARL17B和KANSL1定位在疾病相关的MAPT位点(17q21.31),通常作为融合转录本(KANSL1:ARL17B)被发现,经常经历多态性易位,并已涉及神经疾病,包括ALS、PD和MS。
- 为了检查表达变异的可能遗传原因,检查了按MAPT单倍型分层的供体水平归一化基因表达。观察到两种 distinct 的ARL17B表达模式,可能与H1和H2 MAPT单倍型相关,较低表达与H1H1基因型相关。
- 观察到单倍型按遗传祖先分层,其中H2H2基因型几乎 exclusively 见于EUR祖先,与先前报道一致。
- 还复制了先前的发现,表明H1H1单倍型与PD易感性相关,并观察到H1H1基因型增加PD风险,优势比(OR)为4.125,尽管比先前报道的(1.42或1.46)高得多。
- 此外,测试了H1单倍型对非APOE4携带者中AD的贡献,但未发现显著关联(P≤0.302)。
- H1单倍型对MAPT位点附近几个与神经退行相关的基因表现出顺式调控效应。具体而言,神经元和星形胶质细胞中的H1单倍型与富含亮氨酸重复序列37A基因(LRRC37A2/A3)表达增加相关。LRRC37A蛋白已显示与α-突触核蛋白相互作用,并在PD脑中与路易体共定位。另一个被H1单倍型上调的基因是pleckstrin同源域含家族M成员1(PLEKHM1),已通过GWAS与PD易感性相关联。H1单倍型还表现出染色体间效应,特别是对磷酸二酯酶8B(PDE8B),一个涉及运动障碍的基因。此外,异质核核糖核蛋白K(HNRNPK),一个参与突触可塑性调控的基因,被H1单倍型下调。
- 具有较低个体间变异的基因具有较高的遗传约束,通过gnomAD功能丧失观察/预期上限分数(LOEUF)评分或GeneBayes约束度量(S_het)测量。这些保守基因在功能上涉及神经系统发育和突触功能,表明神经元发育中的基因程序在个体间保守。
- 另一方面,具有高个体间变异的基因富集基本细胞功能(即管家基因、RNA代谢)和,特别是,细胞对应激的反应,与先前发现一致。
细胞类型组成的跨疾病变异
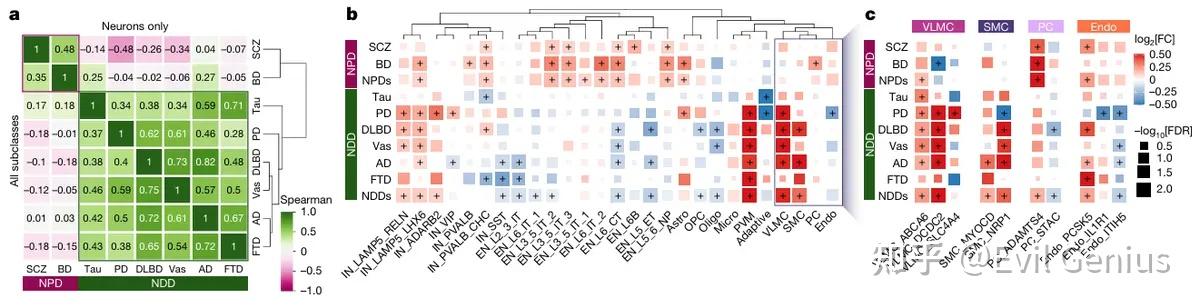
- 使用318名神经典型供体作为基线,系统评估DLPFC细胞组成在八种NDDs(AD、DLBD、Vas、Tau、PD和FTD)和NPDs(SCZ和BD)中的变异。
- 使用所有亚类水平细胞类型,发现总体细胞类型组成变化大致按NDDs和NPDs分层,形成 distinct cluster。
- 平均而言,仅关注神经元时相关性更大,强调其在神经疾病病因学中的关键作用。
- 值得注意的是,观察到DLBD与AD和Vas之间更强的相似性。此外,观察到FTD-AD(所有细胞)和FTD-Tau(神经元)之间的相似性。
- 进一步探索每个亚类,识别出同一疾病类别内神经元和胶质细胞类型流行率的显著重叠。
- 具体而言,NDDs以非神经元细胞丰度较高为特征,特别是VLMCs和其他血管细胞类型,以及特定抑制性神经元亚类升高,即IN_LAMPS_RELN、IN_LAMPS_LHX6和IN_ADARB2。
- 相比之下,NPDs主要与神经元细胞增加相关,特别是L5-6中的深层ENs。
- 为了进一步识别驱动血管细胞类型组成变化的特定亚型,使用亚型水平注释分析8种NDDs和NPDs的组成变异。
- 由此,识别出进一步区分NDDs和NPDs的每个亚类的主导亚型。例如,血管软脑膜细胞(VLMCs)是脑的屏障形成成纤维细胞,转录上分为三个亚型:两个脑膜VLMCs(VLMC_DCDC2和VLMC_SLC4A4)和一个血管周围VLMC(VLMC_ABCA6)。亚型水平分析表明脑膜VLMC_DCDC2的极化反应,其比例增加特异性与大多数NDDs相关。
基因表达的跨疾病变异
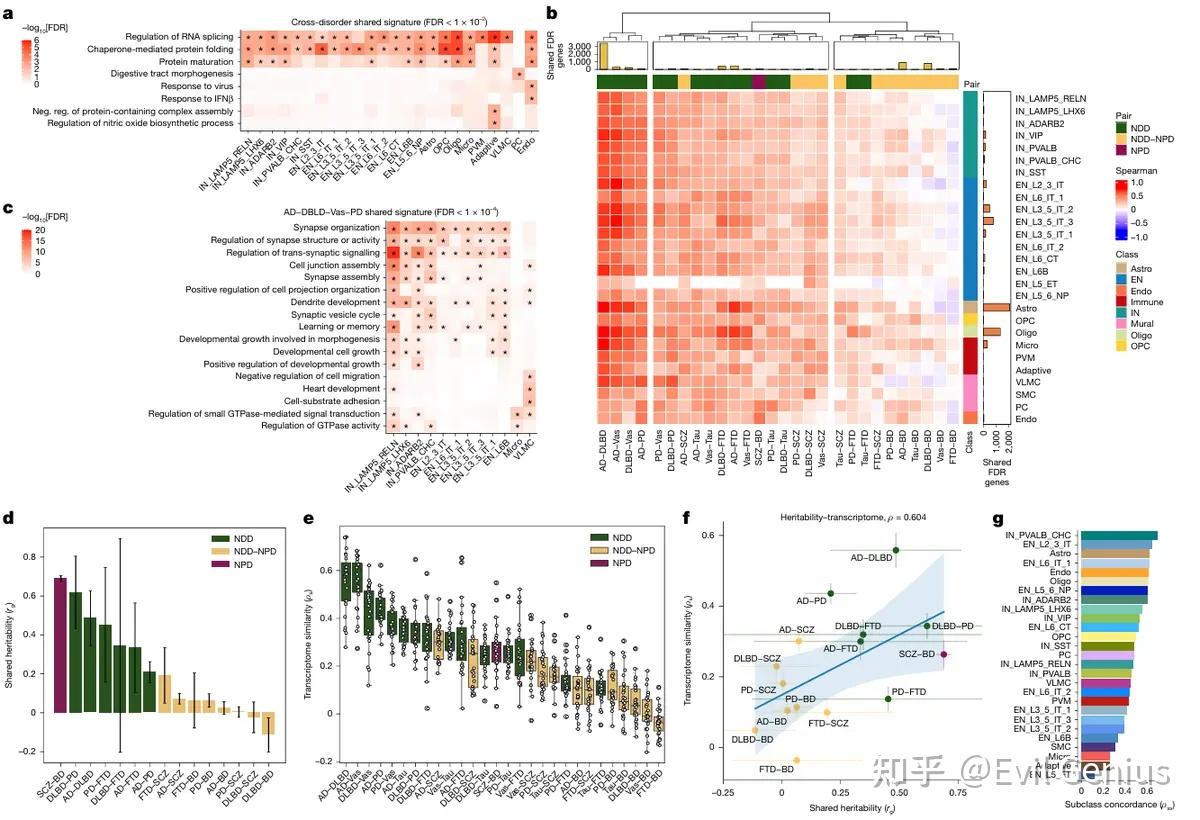
- 分析跨多种疾病的基因表达签名可揭示共享分子通路,促进改进诊断和靶向治疗。因此,评估NDDs和NPDs之间的共享程度。
- 使用伪批量方法和精度加权回归建模(dreamlet软件)对八种NDDs和NPDs进行差异表达基因(DEGs)综合分析。
- 在识别每种疾病对比和组织来源的DEGs后,跨三个组织来源进行标准频率固定效应荟萃分析,定义共识疾病性状签名。
- 然后应用多变量贝叶斯荟萃分析(mashr)跨细胞类型和疾病性状,产生效应大小的后验估计和每个效应非零的后验概率。
- 使用复合测试方法,估计每个效应特定于某一性状或跨性状共享的后验概率。
- 以细胞类型特异性方式评估跨疾病共享,并将总疾病效应分解为共享和疾病特异性组分。
- 证明跨疾病签名具有更高程度的疾病效应共享,并包含关键转录过程,如mRNA剪接和加工,以及蛋白质定位到线粒体。
- 观察到的共享签名影响对正常细胞功能至关重要的基因,符合疾病的omnigenic模型,并进一步支持这些基因的多效性。
- 具有疾病特异性效应的基因与共享效应基因相比,具有更高的罕见变异负荷,在VIP⁺和PVALB⁺中间神经元中观察到统计显著富集。
- 为促进核心疾病相关功能基因的识别,从整体DEG表达谱中扣除具有共享效应的基因。
- 使用残差疾病特异性效应,量化性状之间的成对转录组相似性。
- NDDs或NPDs对之间的相似性大于NDD-NPD对比,其中AD、DLBD、Vas和PD最相似。
- 随后使用这四个转录组相似性状的疾病特异性效应进行荟萃分析,涉及中间神经元(IN_LAMPS_RELN、IN_ADARB2和IN_PVALB)中的神经元发育和突触信号通路,以及VLMC亚类中的血管发育。
- 比较成对转录组相似性与成对性状共遗传力(常见遗传变异),可估计共享遗传影响对分子表型的贡献。
- 使用GWAS计算疾病对之间的共享遗传力(r_g),发现NDDs或NPDs内的对(如DLBD-PD、SCZ-BD)比跨NDDs和NPDs的对表现出更高程度的共享遗传力。
- 量化跨NDDs和NPDs的成对转录组相似性(ρ_s),揭示不同程度的转录组重叠,某些疾病对(如AD和DLBD)表现出高度相似性。
- 通过将共享遗传力与跨细胞类型的平均转录组相似性相关,获得遗传力-转录组一致性(r_g-ρ_s),表明强正相关。
AD病理的转录组变异
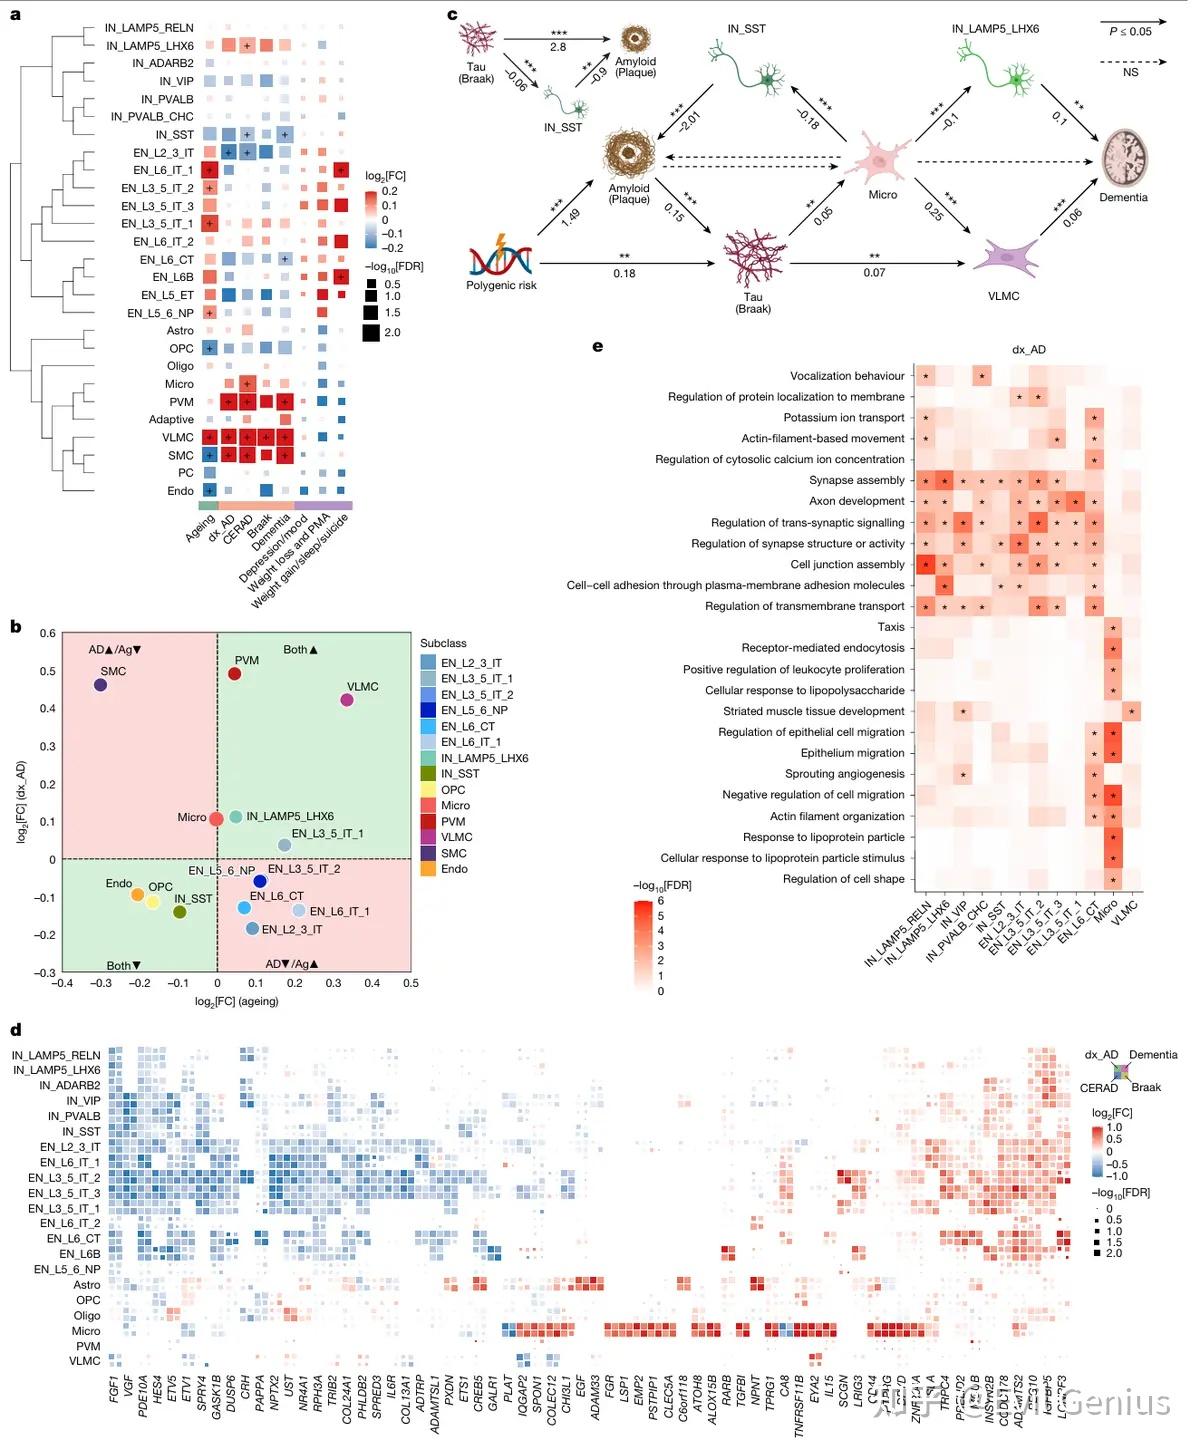
- 为确定基因程序如何响应AD病理严重程度增加而变化,表征27个亚类中的DEGs。
- 总体而言,DEGs在不同AD病理变量之间具有高一致性,与先前报道一致,疾病签名与先前研究高度一致。
- 总体而言,AD中的DEGs(FDR<0.05)可概括为血管细胞类别(Mural和Endo)中基因上调,而神经元中基因倾向于下调。
- 观察到小胶质细胞特异性DEGs(包括DPYD、IL15和PTPRG)通常比其他亚类具有更高的效应大小。
- 进一步表征小胶质细胞相关基因签名,发现它们特异性富集参与细胞运动和迁移负调控以及脂蛋白反应的通路。
- 神经元中的基因表达变化 largely 与突触功能相关,包括突触组装、发育、信号和膜转运。
- 最后,VLMCs中改变的基因涉及肌肉组织发育。
- 使用正常衰老、不同AD病理测量(二元AD诊断dx_AD、CERAD评分、Braak分期、序数痴呆量表)和AD内三类NPS进行组成变异分析。
- 比较衰老(Ag)和AD之间的组成变化:绿色表示一致变化,红色表示不一致变化。仅显示至少有一个FDR显著对比的亚类。
- 使用PRS、平均斑块、Braak分期和痴呆量表进行因果中介分析。CLR转化的亚类分数用于建模。统计显著性在箭头上方表示(自举法估计P值),下方数字表示系数。SST中间神经元对Aβ斑块积累的中介效应单独显示。
- AD表型中的DEGs:在脑库之间进行荟萃分析。显示顶部基因(FDR<0.01且效应大小≥0.35)。
- 使用GO BP通路按亚类进行DEGs功能富集分析。显示FDR≤0.01(超几何检验确定)。GO术语使用rrvgo缩减。
AD病理轨迹的非线性动态
- 近期研究强调AD进展过程中基因表达和细胞功能的复杂、时间依赖性变化。早期阶段以炎症增加、星形胶质细胞反应性、血脑屏障功能障碍和 select 神经元群体脆弱性增加为特征。这些之后是更失调的免疫反应和晚期更广泛的神经元丢失。
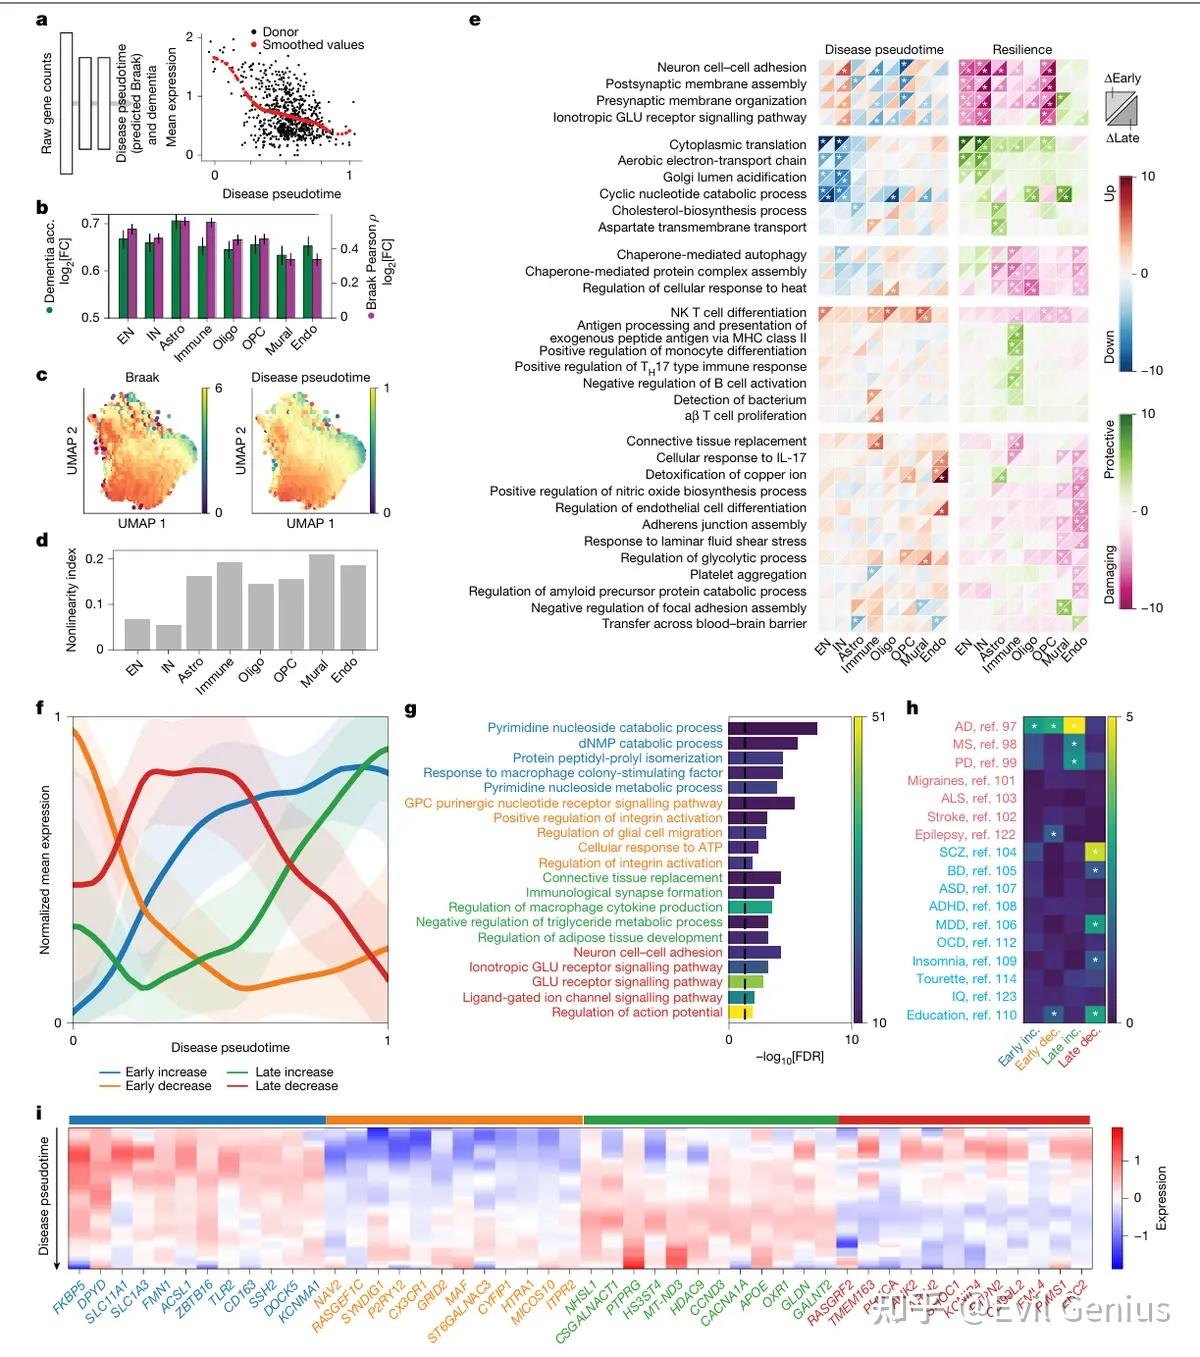
- 为进一步研究AD发病机制背后的基因表达动态,使用神经网络模型从AD进展的半定量测量(即tau蛋白病和认知下降)生成两个独立的细胞类型特异性疾病轨迹。
- 由于tau蛋白病和痴呆相关,不 disentangle 其效应的模型可能错过具有相反表达模式的基因。例如,如果基因表达随tau升高但随痴呆降低,这些效应可能相互抵消,掩盖显著变化。
- 因此,为去相关Braak和痴呆模型预测,在模型训练期间等量采样Braak分期和痴呆状态的所有组合。
- Braak和痴呆模型预测的准确性在所有八个细胞类别中显著高于随机(P<1×10⁻⁴,自举法),预测在交叉验证数据上生成,使用非重叠供体进行训练和测试。
- 在UMAP空间中可视化小胶质细胞的Braak模型预测(此后称疾病pseudotime),显示实际Braak值与模型预测紧密对齐。
- 许多过去研究表明基因表达可随疾病进展非线性演变。因此,对所有疾病pseudotime轨迹(跨所有基因和细胞类型)的拼接进行PCA分析,揭示早期和晚期疾病阶段之间存在非线性转变,并显示胶质和血管轨迹比神经元轨迹更非线性(P<0.05,Wilcoxon秩和检验)。
- 除了疾病pseudotime轴,还计算了痴呆韧性评分,测量基因表达与预测痴呆的相关性(以预测疾病pseudotime为条件)。
- 如果基因表达增加与预测痴呆降低相关(以疾病pseudotime为条件),则该基因被认为是保护性的;如果基因表达增加与预测痴呆增加相关,则被认为是损害性的。
- 确定最能概括与疾病pseudotime和韧性早期和晚期变化相关的生物学变化的top 32 Gene Ontology (GO) Biological Process (BP) 通路。
- 通路的语义聚类识别出五个功能cluster:
- 突触功能:早期OPCs下调,晚期神经元上调、免疫细胞下调。增加表达与韧性降低(损害性)相关。晚期增加可能与突触丢失后的代偿机制有关。
- 细胞代谢:涉及蛋白质翻译、线粒体功能和酸化,随疾病pseudotime增加在神经元中强烈下调。代谢通路表达降低与韧性降低相关(代谢增加是保护性的)。
- 细胞应激:包括伴侣介导的蛋白质组装、自噬和热反应。在非神经元细胞中,早期和晚期细胞应激增加均与认知下降强烈相关。
- 免疫反应和炎症:免疫细胞涉及抗原呈递、辅助T细胞反应和单核细胞分化,均与痴呆韧性相关(保护性)。
- 血管细胞:涉及粘附连接组装、IL-17反应、糖酵解、内皮细胞分化和一氧化氮合成的损害性变化。
- 还聚焦于风险基因富集的GO BP通路,识别潜在因果通路。一个特别显著的例子是肽基-苏氨酸磷酸化负调控,已涉及tau磷酸化。该通路的平均表达在两种神经细胞类型中早期选择性下降,包括风险基因SPRED2。
- 由于先前研究强调免疫反应在AD中的重要性,更详细检查该细胞类别。
- 为帮助可视化AD中免疫反应的非线性动态,根据对tau蛋白病增加的反应将基因表达轨迹分为四个模块:早期增加、早期减少、晚期增加、晚期减少。
- 四个轨迹模块的基因富集显示:参与巨噬细胞集落刺激和嘧啶代谢的通路在早期上调,而迁移、嘌呤能信号和整合素激活下调。在疾病后期,脂质相关通路(如脂肪组织发育和甘油三酯代谢)以及细胞因子产生增加,而突触相关通路下调。
- 使用GWAS汇总统计对每个轨迹模块top 250基因进行基因集富集分析,揭示晚期增加基因与AD关联最强(FDR≤1.7×10⁻⁷),早期增加(FDR≤1.7×10⁻³)和早期减少(FDR≤7.9×10⁻⁴)基因也显著相关。
- 值得注意的是,晚期增加轨迹模块还与其他NDDs(包括MS和PD)显著相关。还发现许多细胞类别的变化与NPD风险位点显著重叠。
- 进一步检查与轨迹模块相关的基因。几个稳态小胶质细胞标记物(包括CX3CR1、NAV2和P2RY12)是随疾病pseudotime增加的前5个早期减少基因(FRMD4A和CERC2在17,265个编码基因中排名前20)。
- 相比之下,几个早期增加基因(如ACSL1、DPYD和CD163)最近被涉及APOE4/4 AD患者的致病性脂滴积累表型(另一个相关基因NAMPT排名第134)。
- 为在更精细时间分辨率解析免疫反应,使用滑动窗口跨疾病pseudotime进行通路富集。结果提示两个 distinct 免疫阶段:初始先天反应,随后是更适应性和单核细胞驱动的反应,伴随细胞因子产生增加。
- 脂质稳态和外排通路(许多涉及已知AD风险基因)在整个疾病进展中增加,特别是在后期,支持小胶质细胞发展脂滴积累表型可能加剧疾病进展的假设。
讨论
- 报告了使用1,494名供体生成的人类DLPFC综合单核转录组图谱,包括神经典型对照和受一系列复杂神经退行性和/或神经精神疾病影响的个体。
- 分析提供了对DLPFC细胞异质性的见解,包括观察到约10%的总转录组变异可归因于个体间差异。
- 值得注意的是,发现具有较低个体间变异的基因处于更高的遗传约束下。这些基因程序富集神经元发育通路,表明其在发育和适应性中的关键作用。
- 使用疾病图谱表征跨疾病和疾病特异性对病理条件的反应,揭示NDDs和NPDs之间共享和 distinct 的细胞组成谱。
- 共享签名包括对正常细胞功能至关重要的基因(mRNA加工和蛋白质定位),符合omnigenic模型。
- 通过聚焦核心疾病特异性功能基因,发现具有更高遗传风险重叠的疾病对倾向于具有更大的细胞类型特异性转录组一致性,证实了先前来自bulk测定的观察。
- 共享差异表达模式与遗传共遗传力之间的一致性表明,重叠转录组签名反映受多效性风险变异影响的核心生物过程。
- 一致性更高的细胞类型(包括深层兴奋性神经元和PVALB⁺ Chandelier细胞)可能代表遗传风险收敛的关键位点,可能需要在机制研究中优先考虑。
- 虽然疾病特异性差异表达签名对理解疾病特异性病理生理学仍重要,但共享签名为理解共病和多效性的基本过程提供了窗口。
- 在发现中,观察到脑血管系统与AD中免疫功能障碍密切相关。总体而言,在大多数NDDs中看到血管细胞类型相对增加,并证明VLMCs水平在AD中特别升高,尤其是在认知障碍更严重的个体中。
- 先前已显示脑膜淋巴系统在脑中有多种作用,包括废物清除和适应性免疫反应。鉴于VLMCs在这些过程中的作用,其对疾病的贡献值得进一步研究。
- 对AD病理轨迹的分析与各种提出的假设一致,特别是对疾病最早阶段受影响的通路。
- 神经元、免疫和血管细胞表现出 distinct 的脆弱性,跨相关通路共享改变。
- 在神经元中,观察到代谢功能(环核苷酸分解代谢过程、细胞质翻译和ATP合成)下降,与突触功能障碍和认知下降密切相关。
- 另一方面,免疫反应似乎 generally 是保护性的,早期先天免疫激活随后适应性免疫反应与痴呆韧性相关。特别是单核细胞分化在早期和晚期疾病阶段均起保护作用,与单核细胞来源巨噬细胞在免疫系统持续应激时作为增援的观点一致。
- 唯一例外是免疫、壁和内皮细胞类别对IL-17的反应,在AD早期阶段是损害性的。IL-17与认知下降和血脑屏障破坏相关,阻断IL-17功能已显示可减轻AD小鼠模型中的认知缺陷。
- 此外,伴侣与许多疾病相关过程密切相关,包括tau错误折叠和聚集以及神经毒性;然而,其在AD发病机制中的精确作用仍不清楚。结果表明伴侣可根据细胞背景发挥相反作用——对胶质、免疫和内皮细胞损害性,但对神经元可能保护性。
- 最后,内皮细胞应激、分化和粘附/连接通路上调与认知下降相关,与血脑屏障功能障碍(痴呆的已知标志)可能触发这些通路代偿性增加的观点一致。
- 总之,这些见解加深了对AD发病机制的理解,并涉及值得进一步研究的细胞反应。
- 虽然人脑包含众多功能 distinct 的区域,但本研究限于DLPFC。未来包括额外脑区的研究将提供更广泛表型的见解,并更全面地看待健康和疾病中脑功能的分子基础。
- 此外,更详细的空间分析(包括全细胞转录组学)可进一步阐明导致疾病的生理背景。分析更多细胞可能揭示更罕见的疾病相关细胞类型或亚型,而整合额外组学模态(如蛋白质组学或表观基因组学)将提供更深入的分子见解。
- 总体而言,PsychAD单细胞疾病图谱作为独特的基础资源,进一步理解人脑中群体水平疾病相关转录组变异。
最后来看看方法
xenium数据分析
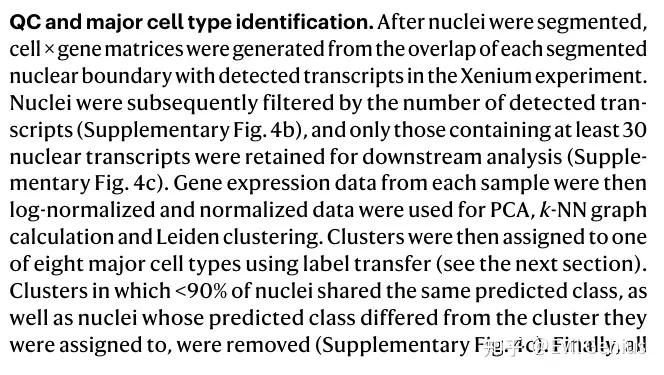
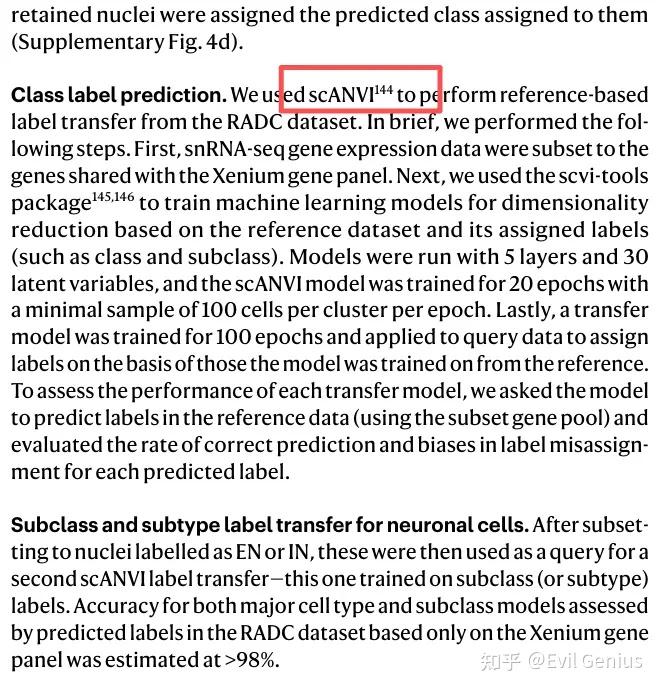
生活很好,有你更好。
原创声明:本文系作者授权腾讯云开发者社区发表,未经许可,不得转载。
如有侵权,请联系 cloudcommunity@tencent.com 删除。
目录
腾讯云开发者

Copyright © 2013 - 2026 Tencent Cloud. All Rights Reserved. 腾讯云 版权所有
深圳市腾讯计算机系统有限公司 ICP备案/许可证号:粤B2-20090059  粤公网安备44030502008569号
腾讯云计算(北京)有限责任公司 京ICP证150476号 | 京ICP备11018762号