文献分享(visium HD)--空间转录组学揭示骨关节炎软骨下骨微环境异质性
原创
文献分享(visium HD)--空间转录组学揭示骨关节炎软骨下骨微环境异质性
原创
追风少年i
发布于 2026-10-10 09:02:23
发布于 2026-10-10 09:02:23
作者,Evil Genius
AI时代,大家要学会拥抱这种新变化,但是切记工具只是工具,更重要的是要强化自身。
今日我们分享文献
摘要
尽管越来越多的证据表明软骨下骨改变与骨关节炎(OA)相关,但软骨下骨重塑的空间组织仍不清楚。本研究将空间转录组学应用于人类软骨下骨,识别出一个空间保守的成骨核心-晕架构,该架构在硬化微环境中显示转录重编程。空间依赖性和定制的细胞-细胞通讯框架揭示,成骨细胞-破骨细胞空间耦合被破坏,成骨细胞-间充质相互作用增强,并识别出FN1-SDC2和COL1A1-DDR2作为可能促成异常骨重塑的候选基质-成骨信号轴。此外,研究呈现了骨细胞的原位转录景观,并揭示其在异常骨重塑中的潜在调控作用。研究进一步描绘了一个空间生态型连续体,在病理状态间表现出不同的富集、空间拓扑重组和生态型间通讯重连。代谢通量推断还揭示硬化微环境中多个生态型的底物受限、应激状态。总之,研究结果为理解OA中异常软骨下骨重塑提供了关键见解,并为未来机制研究和治疗探索提供了有价值的框架。
引言
- 骨关节炎(OA)是最常见的退行性关节疾病,是全球中年和老年人群疼痛、功能障碍和残疾的主要原因。其发病越来越多地在年轻个体中观察到,由于长期管理需求和相关共病如心血管疾病、代谢综合征、糖尿病和心理健康问题,构成了日益增长的全球公共卫生和社会经济挑战。尽管患病率高,目前尚无能够阻止或逆转疾病进展的有效药理学策略。理解OA进展机制对于开发可减少这一巨大疾病负担的疾病修饰疗法至关重要。
- 越来越多的证据表明,软骨下骨(SCB)的异常重塑不仅是OA的结果,还可能先于并介导软骨退变和OA进展。在OA中,常观察到SCB硬化伴孔隙率降低、骨体积分数增加、骨髓纤维化、成骨细胞-破骨细胞耦合改变和骨髓脂肪减少,伴随矿化受损和机械性能改变。SCB的异常骨形成可能扰乱骨软骨界面,促进血管侵入,加速软骨破坏。鉴于SCB重塑在OA发病机制中的关键作用,剖析其空间和分子微环境可以阐明疾病进展的潜在机制并发现新的治疗靶点。
- 由于骨是由多种细胞类型组成的结构复杂组织,包括成骨细胞、破骨细胞和骨细胞,每个细胞群体的功能和命运与其精确解剖位置和局部微环境紧密耦合。先前的骨关节炎SCB批量转录组研究识别了OA相关重塑特征,但平均了异质区域的信号,掩盖了驱动进展的 distinct 微环境生态系统。最近的OA SCB单细胞RNA测序(scRNA-seq)揭示了细胞类型异质性和与疾病进展相关的推定细胞-细胞通讯网络。然而,单细胞方法缺乏空间背景,忽视了精确的细胞解剖定位。因此,这些研究不足以确定空间协调的转录、细胞相互作用和组织架构变化如何驱动SCB中的病理骨重塑。疾病相关改变通常表现为细胞组成和信号活动的空间限制性变化,这无法被解离的批量或单细胞转录组学完全捕获。
- 研究团队先前整合空间和单细胞转录组学的研究建立了人类骨组织架构图谱。然而,该参考图谱缺乏SCB的代表,并未捕获与OA中异常骨重塑相关的空间和分子改变。最近的空间质谱成像研究进一步强调了对OA相关组织重塑进行原位研究的必要性。在人类膝关节组织中,这些研究揭示了SCB中空间异质性细胞外基质(ECM)重塑和髌下脂肪垫组织中区域特异性脂质改变,支持空间分辨方法对剖析OA相关组织重塑的重要性。然而,迄今为止没有研究系统地绘制OA中人类SCB的空间生态系统,包括细胞相互作用和代谢状态的空间协调。因此,迫切需要全面的空间分辨框架来系统绘制OA中的SCB生态系统,使细胞组织、细胞间通讯和代谢重塑的原位整合剖析成为可能。
- 为了弥合这一差距,研究团队对人类髋OA患者的股骨头标本进行了空间转录组 profiling,聚焦于SCB硬化和邻近非硬化区域,后者作为机械可比较的参考以最小化应力相关混杂效应。认识到脱钙诱导的RNA降解和组织脱离限制了人类骨的空间 profiling,研究团队开发了优化的处理工作流程,始终实现高RNA完整性并显著降低组织脱离概率。通过整合高分辨率空间转录组学(ST)与计算去卷积和生态建模,构建了一个前所未有的SCB微环境空间图谱,捕获其细胞架构和区域异质性。研究揭示了保守的成骨核心-晕架构,在硬化和非硬化微环境之间表现出不同的基因表达谱、通路富集和细胞间通讯模式。特别是,表征了骨细胞的转录景观,发现骨细胞选择性上调与异常骨形成空间相关的成骨特征,暗示其协调参与异常SCB形成。此外,揭示了 distinct 空间生态系统,并系统表征了跨SCB硬化和邻近非硬化微环境的邻域架构、生态型间通讯网络和生态型特异性代谢状态。总之,这些发现建立了理解局部微环境线索如何驱动OA中异常SCB重塑的综合空间框架,并为潜在治疗途径提供了新见解。
结果
结果1、SCB骨髓的空间转录组图谱
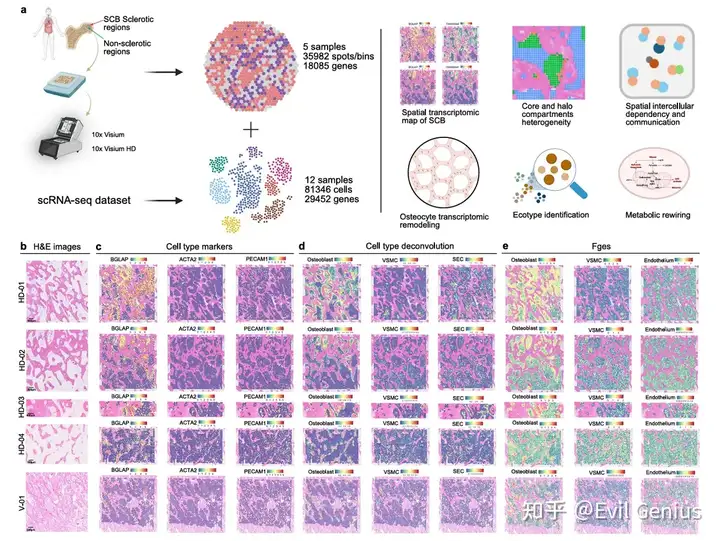
- 为了表征跨不同解剖区域的SCB的分子和细胞架构,分析了来自三名髋OA患者的五个样本,包括三个来自软骨下硬化区域的样本和两个来自邻近非硬化区域的样本。
- 空间转录组 profiling 使用Visium和Visium HD对福尔马林固定石蜡包埋(FFPE)和CytAssist平台进行。为了保持Visium HD和标准Visium平台之间的一致性,Visium HD数据集使用56 μm的bin大小处理。
- 基于苏木精和伊红(H&E)图像手动分割和排除骨小梁区域。去除低质量spots/bins后,总共保留29,290个骨髓spots/bins用于下游分析,包括18,665个来自硬化区和10,625个来自非硬化区的spots/bins。
- 应用多步骤方法确保每个细胞群体准确映射到SCB骨髓内预期的组织学结构,并验证ST数据的整体质量。首先,验证具有明确空间架构的代表性细胞类型的定位,包括成骨细胞(BGLAP)、血管平滑肌细胞(ACTA2)和内皮细胞(PECAM1)。
- ST数据涵盖来自软骨下硬化和非硬化骨小梁区域的异质性骨髓亚区域,捕获成骨和血管微环境的复杂性。
- 为了实现更高分辨率分析,使用基于参考的稳健细胞类型分解(RCTD)去卷积算法,以人类骨髓scRNA-seq数据集为参考对ST数据进行去卷积。
- 某些骨髓驻留细胞类型,如多核破骨细胞和含脂滴的脂肪细胞,由于细胞捕获和裂解的技术挑战在单细胞数据集中代表性不足。为了确保这些群体的适当代表,将Visium HD bins聚合为16 μm bins以识别富含破骨细胞或脂肪细胞特征的位点,并将这些富集bins作为补充参考谱纳入去卷积。
- 去卷积衍生的细胞组成显示与H&E切片中观察到的组织学架构高度空间一致性。邻近骨小梁边界的spots/bins主要含有成骨细胞特征,反映其预期解剖位置。血管平滑肌细胞(VSMCs)主要分配到对应动脉壁的区域,而窦状内皮细胞(SECs)集中在静脉和窦样区域。
- 精确细胞类型注释与空间基因表达数据的整合使SCB微环境在高空间分辨率下得以全面检查。进一步评估细胞类型相关功能程序以捕获与成骨活动、血管调控和骨髓重塑相关的关键转录和细胞特征。功能特征的基因集评分提供了空间 distinct 细胞状态和微环境特异性过程的额外确认。这个整合空间框架允许联合评估跨骨形成水平不同区域的细胞组成、转录调控和信号改变。结果,可以在SCB骨髓解剖定义区域内研究人类OA中异常骨重塑相关的微环境动态。
结果2、核心-晕区室在SCB中表现出 distinct 特征
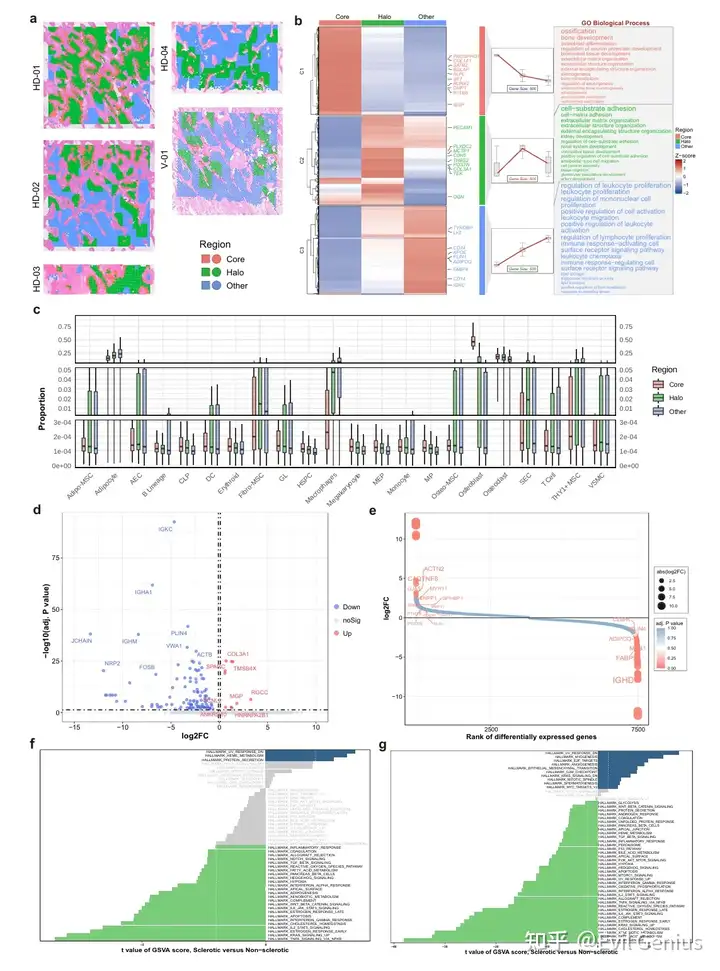
- 为了检查SCB骨髓内的区域特异性重塑,基于成骨细胞的空间富集描绘成骨核心。具有高成骨细胞富集的bins/spots定义为核心区域,而周围的六spot/六bin层构成晕区域;所有剩余spots/bins分类为其他区域。
- 差异表达和通路富集分析证明核心、晕和其他区域之间 distinct 分子程序。核心区域显示与骨化、ECM沉积和成骨细胞分化相关的基因显著上调,包括ALPL、COL1A1、SP7、RUNX2、BGLAP和IBSP。富集的生物过程反映活跃的骨基质矿化、软骨内骨化和成骨谱系承诺。
- 相反,晕区域以参与细胞-基质相互作用和基质或血管重塑的基因表达升高为特征,如PECAM1、TEK、POSTN和THBS2。与这些特征一致,功能通路包括细胞-基质粘附、细胞外结构组织、组织迁移和血管及动脉发育。
- 剩余骨髓区域显示混合免疫-脂肪特征,以高度表达的免疫相关基因如LYZ、CD74和IGKC为特征,连同脂肪细胞相关转录本包括PLIN1、ADIPOQ和FABP4。通路分析揭示白细胞增殖和免疫信号激活,以及与骨髓脂肪细胞存在一致的特征。
- 为了证明核心-晕结构反映生物空间模式而非方法学伪影,检查了两个极端阈值作为比较。在top 5%时,成骨通路在晕区域富集,在top 35%时,晕包含免疫相关信号通路,分别与晕边界预期的向内和向外空间偏移一致。
- 进一步评估核心-晕架构在48 μm和40 μm分辨率下的稳健性,发现其在两个分辨率下保持定性一致。这些结果支持核心-晕结构捕获微环境内空间连续模式。重要的是,这种空间分层的核心-晕分子组织在硬化和非硬化微环境中一致观察到,表明该模式反映骨髓的固有结构和功能架构。
- 细胞类型去卷积证明核心、晕和其他区室之间 distinct 细胞组成。如预期,核心区域高度富集成骨细胞,与其邻近骨小梁表面一致。相反,晕显示基质和血管细胞类型丰度最高,包括VSMCs和SECs。在其他区域,观察到巨噬细胞的选择性增加,而其他免疫谱系(如B细胞、T细胞、树突状细胞和单核细胞)未超过核心或晕中看到的水平。
- 总之,这些发现定义了一个协调的空间核心-晕模式,其中经历活跃骨形成的成骨核心被经历血管和基质重塑的晕包围。
结果3、SCB中的空间细胞间依赖性和通讯
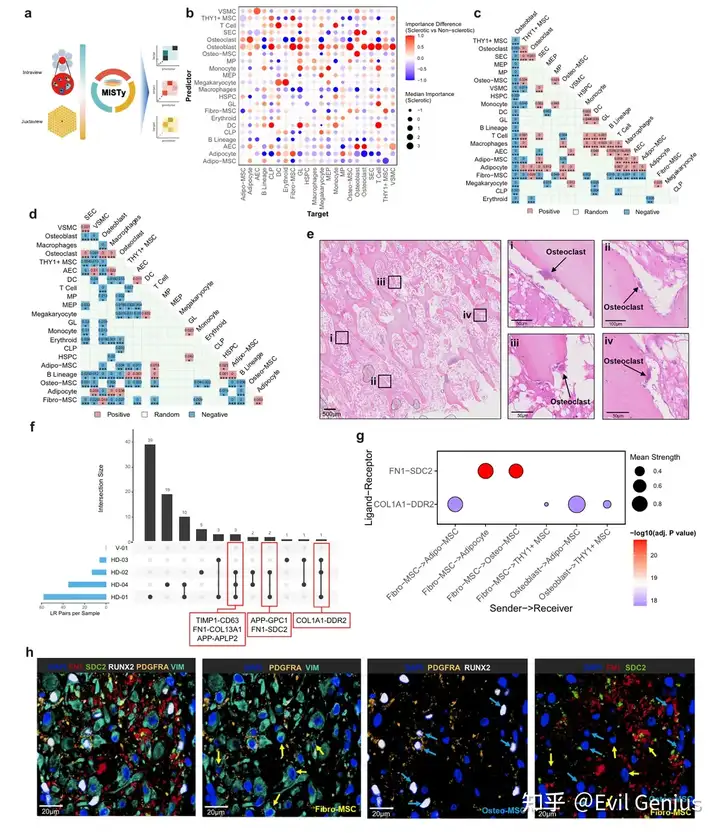
- 为了进一步剖析核心-晕区域内可能促成异常骨形成的协调重塑,评估空间细胞间依赖性和通讯。MISTy是一种可解释机器学习框架,用于量化局部细胞微环境如何影响成骨和血管群体。
- 基于每个spot/bin内的相对细胞类型组成,系统建模跨多个空间尺度的所有主要细胞类型的丰度模式,从spot内相互作用到短程邻域范围(六spot/六bin半径)。通过比较硬化和邻近非硬化微环境,发现成骨细胞在硬化微环境中显示对多种细胞类型的全局增加预测重要性。
- 值得注意的是,基于去卷积衍生细胞类型丰度图谱的空间共现分析显示,成骨细胞-破骨细胞共定位在非硬化微环境中持续存在,而这种共现模式在硬化微环境中丢失。这表明骨形成和吸收之间的空间协调被破坏,可能反映SCB中转向不平衡骨形成的转变。与这一结果一致,H&E染色确认了非硬化微环境中成骨细胞和破骨细胞的空间共定位。Osteo-MSCs表现增强的与成骨细胞和脂肪细胞的预测关联,选择性增强Osteo-MSC-成骨细胞依赖性。这种模式与间充质祖细胞向成骨谱系增强招募一致。
- 相反,硬化微环境中成骨细胞与脂肪细胞的耦合增加可能反映骨髓重塑骨区域内MSC和脂肪细胞之间改变了的相互作用。血管谱系(动脉内皮细胞(AEC)、SEC和VSMC)与成骨或破骨群体的预测共定位显著增强。这种模式与表征过度骨重塑区域的血管-成骨耦合一致,表明硬化微环境中血管贡献增加支持成骨和破骨动态。
- 认识到微环境背景塑造细胞命运和空间组织,开发了一个专用框架来推断软骨下硬化和邻近非硬化微环境内的空间分辨细胞间通讯。首先识别每种条件下配体-受体对的空间共定位。
- 值得注意的是,虽然非硬化微环境未产生任何显著共享的配体-受体对,硬化微环境表现出 distinct 的空间共定位相互作用集。具体而言,六个配体-受体对(TIMP1-CD63、COL1A1-DDR2、FN1-COL13A1、APP-APLP2、APP-GPC1和FN1-SDC2)在硬化微环境中跨患者一致显示显著的空间共定位。
- 进一步评估在48 μm和40 μm分辨率下这一发现的稳健性,所有六个配体-受体对保持一致可检测。这些配体-受体对可能参与ECM重塑、成骨分化和血管-成骨耦合相关过程。
- 具体而言,TIMP1-CD63介导ECM重塑并通过CD63依赖性信号促进细胞存活、粘附和迁移。COL1A1-DDR2反映胶原诱导的DDR2激活,其刺激成骨分化和骨形成同时抑制骨髓脂肪生成。FN1-COL13A1和FN1-SDC2代表以纤连蛋白为中心的粘附轴,帮助组织ECM并稳定基质接触。
- XIII型胶原胞外域直接结合纤连蛋白并整合到纤维状FN基质中,在那里调节纤连蛋白组装并影响细胞行为,遗传模型暗示胶原XIII是成骨分化和骨重塑的重要调控因子。类似地,syndecan-2参与纤连蛋白(通常通过TG2-FN复合物)以促进间充质和成骨细胞粘附和存活信号,将ECM组织与基质细胞维持和分化联系起来。
- APP-APLP2在硬化微环境中显示空间共定位,与稳定细胞-细胞接触和组织成骨/基质区室内膜近端信号的trans-adhesive APP家族组装一致。APP-GPC1共定位表明通过glypican-1结合APP的硫酸肝素依赖性微域支架,可能促进成骨线索(如BMP/FGF/Wnt)的局部呈递/放大,并在血管界面处促进机械响应信号。总之,这些相互作用与ECM丰富的硬化微环境一致,其特征在于增强的粘附和信号组织,支持成骨和基质重塑。
- 为了阐明骨髓中识别的共定位配体-受体对的细胞来源和靶标,采用弹性网络回归模型预测发送者和接收者细胞群体。在所有分析的共定位对中,两个配体-受体相互作用产生统计显著预测:FN1-SDC2和COL1A1-DDR2。
- FN1-SDC2信号轴似乎从Fibro-MSCs向Osteo-MSCs和脂肪细胞传递,这可能表明协调的"脂肪细胞损失-增强成骨"病理。推断Fibro-MSCs通过FN1-SDC2驱动异常骨形成,同时促进骨髓脂肪减少,构成骨硬化的核心调控网络。
- 为了提供对这一预测的正交实验支持,硬化样本中的多重免疫染色揭示Fibro-MSCs(RUNX2-PDGFRA+VIM+)和Osteo-MSCs(RUNX2+PDGFRA+)的空间并置,Osteo-MSCs中SDC2表达,周围微环境中存在FN1,与潜在的FN1-SDC2介导的细胞间相互作用一致。尽管这一验证仅限于预测相互作用网络的一部分,但提供了支持FN1-SDC2轴生物学相关性的组织学证据。
- 相反,COL1A1-DDR2轴证明Fibro-MSCs和成骨细胞是主要发送者细胞,与多个间充质群体通讯。这种多向信号模式可能表明COL1A1-DDR2协调跨骨髓生态位的胶原依赖性机械感知和基质细胞响应,可能通过持续ECM积累和间充质细胞激活放大骨硬化病理。
结果4、SCB中骨细胞状态的空间表征
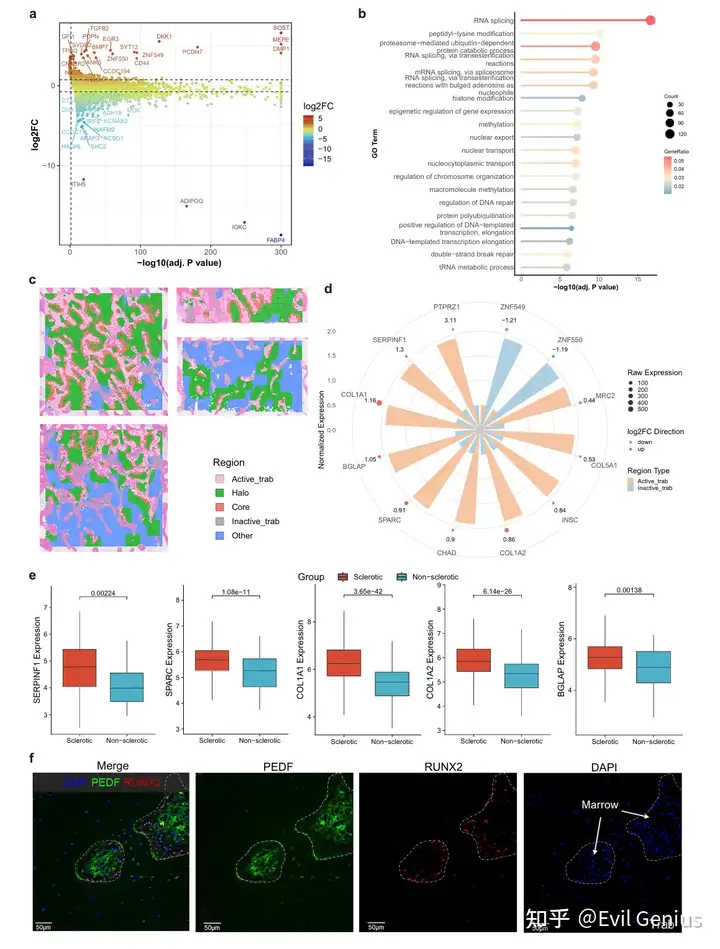
- 骨细胞是骨中最丰富的细胞,作为骨重塑和矿物稳态的关键调控因子。然而,因为它们嵌入矿化基质内,其在骨代谢中的功能作用和转录特征仍不完全清楚。为了进一步描绘硬化骨微环境,接下来聚焦于骨细胞以研究其在骨硬化重塑中的转录重编程和调控作用。质量控制后,总共6,692个骨小梁上的空间bins被纳入下游骨细胞聚焦分析。
- 为了表征嵌入矿化基质内骨细胞的转录景观,比较骨小梁区域和骨髓区域之间的表达谱。差异表达分析揭示骨细胞区室中经典骨细胞标记物(SOST、DMP1和MEPE)、成骨调控因子(TGFB2和BMP7)和转录因子基因(EGR3、ZNF549和ZNF550)的优先表达。
- 相反,骨细胞富集的骨小梁区域显著缺乏免疫相关转录本、骨髓基质/脂肪/免疫标记物(如ADIPOQ、FABP4和IGKC),与矿化骨基质内缺乏造血和脂肪生成群体一致。
- 然后使用骨小梁/骨细胞区域富集的基因进行GO富集分析。该分析揭示RNA加工和剪接、蛋白酶体介导的泛素依赖性蛋白分解代谢和表观遗传调控的主导富集,这些富集模式在条件下一致观察到。顶级生物过程包括RNA剪接、肽基-赖氨酸修饰、组蛋白修饰和甲基化、染色质组织和蛋白酶体介导的蛋白分解代谢,表明骨小梁区室内骨细胞中活跃的转录和表观遗传重塑。核转运相关通路,如核输出和核质转运,也显著富集。总之,这些特征与骨细胞维持高度活跃的转录机器和动态核-质通讯一致,与其作为骨基质稳态机械敏感调控因子的已建立角色一致。
- 基于骨细胞转录景观的表征,接下来询问靠近成骨核心的骨细胞是否采用与远离核心的骨细胞不同的程序。使用成骨核心位置定义邻近性,骨小梁上最靠近核心的四个bin层分类为活跃骨小梁,并与剩余骨小梁骨细胞bins(分类为非活跃骨小梁)对比。
- 在硬化微环境中,邻近活跃骨形成区域的骨细胞表现出显著的成骨和ECM重塑特征,编码结构基质蛋白(COL1A1、COL1A2和COL5A1)、基质细胞蛋白(SPARC和CHAD)和基质周转及矿化调控因子(SERPINF1、PTPRZ1和BGLAP)的基因显著上调。
- 相反,转录因子ZNF549和ZNF550在peri-core组中显著下调。在非硬化微环境中,然而,相同的peri-core与远端比较未识别任何显著差异表达基因。
- 此外,硬化和非硬化微环境之间骨小梁spots的比较进一步显示,COL1A1、COL1A2、BGLAP、SPARC和SERPINF1在硬化微环境中特异性上调,支持与骨硬化相关的增强成骨和基质重塑活动。
- 免疫荧光染色揭示邻近成骨活跃区域(定义为富含RUNX2表达细胞的空间域)的骨细胞中色素上皮衍生因子(PEDF;由SERPINF1编码)表达升高,与SERPINF1的空间上调一致。
结果5、SCB的空间生态系统
- 在上述空间细胞间依赖性模式指导下,接下来询问SCB中是否存在空间组织的多细胞群落,超越简单的共现或丰度差异。推断SCB中邻近细胞群落的扰动可能镜像生态系统破坏,重组局部相互作用和功能,影响疾病进展和骨重塑。
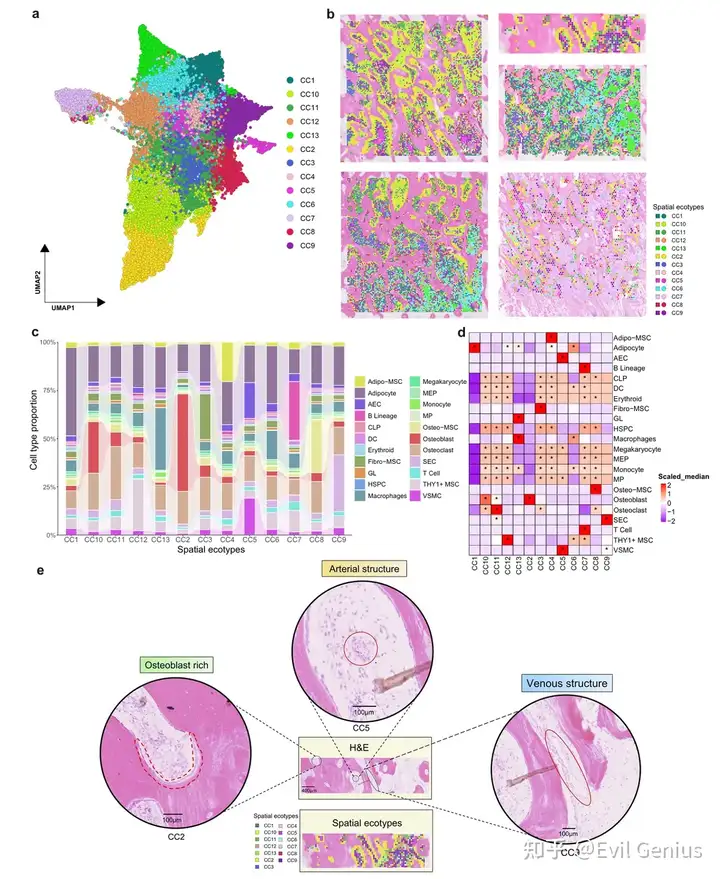
- 为了识别细胞生态型,应用ISCHIA算法。最优聚类数(k)使用肘部法选择为13,基于k值从2到30范围内的平均簇内方差。在运行无监督聚类之前,对Visium/Visium HD基因表达spots/bins进行PCA降维。然后将spots/bins的PCA嵌入用作Composition-cluster函数的输入,将spots/bins分组为13个 distinct 簇,每个以独特的细胞组成为特征。这些簇称为"空间生态型",基于功能相关细胞类型倾向于在组织微环境内以特征性空间模式共现的原则。
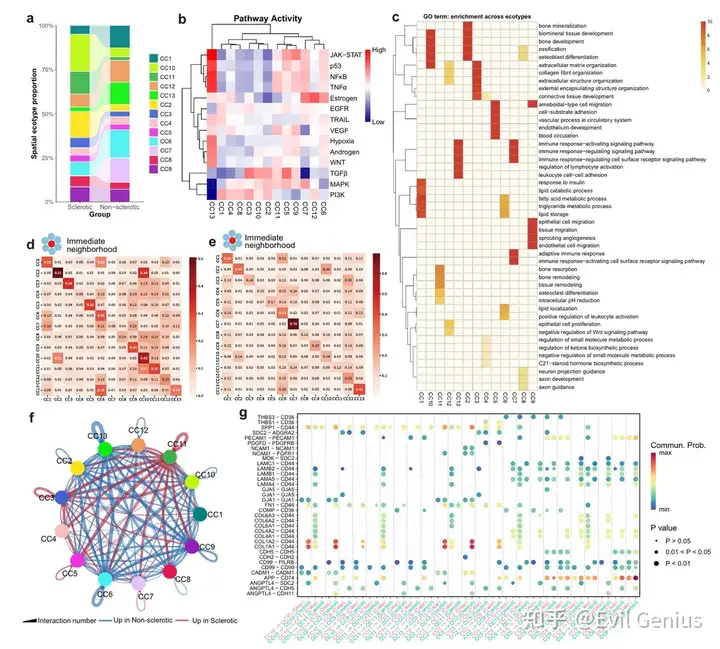
- 观察到硬化微环境中成骨细胞富集(CC2)、纤维血管(CC3、CC5和CC9)和骨重塑(CC10和CC11)生态型的显著扩张,脂肪细胞主导(CC1)和免疫富集(CC7和CC13)生态型的收缩。这些变化突出血管-基质激活作为硬化生态系统的核心特征。
- 这与特化骨内皮亚群("H型"血管)将血管生成与成骨耦合并刺激骨祖细胞活性的证据一致,以及成纤维细胞与这些内皮群体合作通过促成骨和基质重塑信号促进异常骨化。
- 除了组成变化,空间邻域分析揭示硬化微环境中生态型间连通性显著增强。差异相互作用分析进一步显示网络枢纽从CC9/CC6/CC13转向CC3/CC11/CC5/CC4,将协调重新分配到纤维-基质、血管和骨周转生态型。
- 与这一转变一致,配体-受体分析识别重塑的ECM/粘附信号(胶原/层粘连蛋白轴汇聚于CD44),支持骨硬化中增强的基质介导耦合。改变的内皮/血管周围模块(PECAM1-PECAM1、CDH5-CDH5、PDGFD-PDGFRB和ANGPTL4相关相互作用)进一步支持硬化SCB微环境中扰动的基质-血管交叉对话和血管生成重塑。免疫相关相互作用在特定生态型界面重新分配。
- 总之,这些发现表明骨硬化SCB重塑反映生态型丰度、邻域架构和细胞间通讯的协调重连,汇聚于基质沉积、血管重塑和局部炎症信号。
结果6、SCB中空间生态型的代谢重连
- 代谢重编程通过协调细胞能量供应、生物合成能力和代谢物介导信号关键地塑造骨髓生态位内的细胞命运决定和功能状态。基于空间架构和邻域分析,接下来系统研究代谢状态在硬化与非硬化骨髓中是否经历生态型特异性重连。
- 使用单细胞通量估计框架量化代谢通量和代谢应激,该框架采用图神经网络模型从ST数据推断每个空间spot/bin的反应水平通量。
- 在成骨细胞富集生态型CC2中,通量分析显示葡萄糖进入和糖酵解通量的协同减少,从葡萄糖到G6P、通过G3P进入3PD的通量降低。三羧酸(TCA)循环内的多个反应也减弱,包括柠檬酸到2OG和琥珀酰-CoA到琥珀酸的转化。
- 这些反应水平变化伴随硬化与非硬化微环境中相应代谢物的广泛耗竭,包括TCA循环中间体(琥珀酰-CoA、苹果酸、琥珀酸、草酰乙酸和2OG)、氨基酸(谷氨酰胺和甲硫氨酸)和核苷酸及UDP-糖种类。
- 同时,通过dolicyl-phosphate依赖性核心N-聚糖组装的通量增加,而将该核心延伸为复杂唾液酸化和岩藻糖基化N-聚糖的下游步骤选择性减少。总之,生态型CC2显示中心碳和氨基酸稀缺状态,与代谢应激一致。
- 在Osteo-MSC富集生态型CC8中,代谢通量估计未表明中心碳代谢的统一崩溃,而是一系列选择性瓶颈。葡萄糖摄取及其磷酸化为G6P、G3P到3PD的糖酵解中间步骤在硬化与非硬化微环境中减少,而中间糖酵解步骤和大多数下游TCA循环反应显示无显著通量变化。
- 代谢平衡分析揭示多个TCA循环中间体(如琥珀酰-CoA、2OG、苹果酸和草酰乙酸)、氨基酸(谷氨酰胺、半胱氨酸、甘氨酸和精氨基琥珀酸)和嘧啶及糖基化前体如UMP和UDP-GlcNAc的显著耗竭。这些数据表明CC8保留基础糖酵解/TCA循环骨架但在关键进入和氧化步骤受限。与这种底物限制一致,通过dolicyl phosphate依赖性核心N-聚糖组装的通量 largely 保持,而生成复杂、末端唾液酸化和岩藻糖基化N-聚糖的下游反应选择性减少,表明在限制糖基化前体供应下优先维持核心N-糖基化。
- 相反,破骨细胞富集生态型CC11揭示中心碳代谢的全局下移,糖酵解进入减少和多个TCA循环反应活性降低,伴随丝氨酸-甘氨酸-半胱氨酸和谷胱甘肽合成步骤的抑制。
- 与这些变化一致,代谢平衡分析显示硬化与非硬化微环境中TCA循环中间体(2OG、苹果酸和草酰乙酸)、氨基酸(如谷氨酰胺、甲硫氨酸和谷氨酸)以及核苷酸(UMP和dTMP)和糖基化相关前体(dolicyl phosphate)的显著耗竭。相反,IMP、CDP和早期N-聚糖中间体(如GlcNAc4-Man3Asn和Glc3GlcNAc2Man8Asn)在CC11中积累,表明嘌呤生物合成和N-聚糖组装在广泛底物耗竭下相对保持。
- 总之,这些发现描绘了骨髓生态型中空间分辨的代谢异质性,生态型特异性代谢脆弱性可能为选择性靶向硬化SCB中的代谢缺陷提供框架。
讨论
- SCB的病理改变越来越被认为是OA发病机制的重要贡献者。先前研究表明SCB靶向治疗可能有效治疗OA。然而,SCB重塑的细胞逻辑和空间组织仍然定义不清,因为批量和解离单细胞方法掩盖了微观解剖背景,平均了异质细胞状态,未能捕获参与骨形成的成骨、基质、血管和免疫区室如何物理和功能整合。
- 因为人类骨组织需要脱钙,严重损害RNA质量并常导致组织脱离,使人类骨的ST极其罕见,研究团队建立了优化工作流程,保留RNA完整性并最小化组织损失。通过应用空间转录组学,研究揭示了先前未被充分认识的SCB空间图谱。识别了一个保守的、空间有序的骨形成集合,其经历深刻的转录重连、改变的细胞间通讯,peri-core骨细胞经历协调转录变化, underlying OA中异常SCB重塑。进一步描绘了空间生态型连续体,其组成和代谢通量在硬化与非硬化微环境之间不同。通过捕获SCB微环境内的关键空间关系,方法为骨关节炎SCB的生态组织和重塑动态提供了新见解,对未来治疗策略具有潜在意义。
- 与OA SCB的批量RNA研究相比,其掩盖了空间和微观解剖起源,研究发现建立了骨形成微环境组织为保守的核心-晕架构。在这种结构中,成骨核心(活跃骨形成位点)被富含血管和基质重塑的晕包围,表明它代表骨形成微环境的基本组织原则。然而,在硬化微环境中,这种保守结构被转录重连,两个区室都转向增强的基质产生和血管生成状态,伴随脂肪生成和免疫特征减少。核心和晕的同步转化表明OA中的病理骨积累源于骨形成微环境的空间协调重编程,而非仅限于骨形成表面的失调。
- 空间细胞间依赖性分析揭示硬化微环境中成骨细胞-破骨细胞空间耦合被破坏。这种位置解耦与先前在OA软骨下硬化中记录的成骨细胞-破骨细胞耦合改变一致,可能促成软骨下硬化特征的净骨获得。还观察到成骨细胞与Osteo-MSCs之间增强的关联,表明间充质祖细胞向成骨命运增强招募。空间共定位配体-受体对的识别,特别是FN1-SDC2和COL1A1-DDR2,为这些细胞相互作用提供了机制见解。
- 值得注意的是,预测的FN1-SDC2轴得到多重免疫染色的部分支持,其揭示硬化样本中Fibro-MSCs和Osteo-MSCs的空间并置,连同Osteo-MSCs中SDC2表达和周围微环境中FN1存在。尽管这一发现不构成FN1-SDC2介导细胞间相互作用的直接功能验证,但提供了正交组织学证据,加强这一推断通讯轴的空间合理性和生物学相关性。
- 先前研究强烈支持这些轴的生物学合理性。SDC2是一种硫酸肝素蛋白聚糖,作为ECM粘附和信号共受体,对基质组织和细胞-ECM通讯至关重要。FN1含有肝素结合域,直接结合syndecan硫酸肝素链,建立FN1-SDC2相互作用的明确生化基础。此外,SDC2可以调节成骨细胞粘附、增殖和分化,整合WNT和FGF通路。这些特性与发现一致,即从Fibro-MSCs到脂肪细胞和Osteo-MSCs的FN1-SDC2信号可能协调硬化SCB中骨髓脂肪减少和增强成骨。
- 类似地,DDR2是一种胶原激活的受体酪氨酸激酶,其配体I型胶原(COL1A1)使胶原丰富骨生态位中直接的ECM到细胞信号成为可能。DDR2是骨形成所需的,通过ERK1/2和p38 MAPK通路促进成骨细胞分化,并参与对成骨转录程序核心的ATF4-RUNX2轴。DDR2也已被涉及OA病理生理学并被提议作为治疗靶点,强调在OA相关重塑组织中识别COL1A1-DDR2信号的治疗相关性。这些机制特征支持观察,即多向COL1A1-DDR2信号可能产生前馈环路。在这个环路中,胶原积累放大机械感知和基质激活,从而加强骨硬化重塑。总之,FN1-SDC2和COL1A1-DDR2代表生物学上合理的基质-成骨通讯回路,可能促成OA中的病理SCB重塑。
- 对矿化骨小梁内骨细胞的表征揭示其在骨病理中的活跃转录参与。邻近成骨核心的骨细胞表现出显著的基质形成基因上调。其中,SERPINF1编码PEDF,一种有效的内源性血管生成抑制剂。在骨中,PEDF增加骨保护素表达,从而抑制RANKL介导的破骨细胞生成和骨吸收。除了这些血管和破骨细胞调控功能,PEDF还塑造间充质谱系分配:在小鼠和人类间充质干细胞中,PEDF促进成骨细胞分化和基质矿化,同时通过下调PPARγ和其他脂肪细胞标记物强烈抑制脂肪生成分化。
- 在数据中,SERPINF1在邻近成骨核心的骨细胞中选择性上调,表明骨细胞衍生的PEDF可能促成低吸收和低脂肪生成生态位,从而有利于硬化骨基质的持续和扩张。免疫荧光染色进一步证明邻近成骨活跃区域(以富含RUNX2表达细胞的空间域为标志)的骨细胞中PEDF表达升高,支持SERPINF1上调与成骨激活之间的空间关联。SERPINF1在peri-core骨细胞中选择性上调,可能反映嵌入骨细胞在塑造局部重塑微环境中的潜在调控作用。
- 空间生态型分析超越核心-晕框架的局部成骨视角,扩展到SCB微环境内空间生态系统组织的更全局视图。识别13个空间组织的细胞生态型建立了多层生态框架来解释OA中SCB架构。与解离单细胞研究相比,空间图谱揭示这些细胞程序组装成层级结构生态系统,其分布、组成和耦合在硬化与非硬化微环境之间显著不同。
- 值得注意的是,硬化微环境表现出成骨细胞富集(CC2)、纤维血管(CC3、CC5和CC9)和骨重塑(CC10和CC11)生态型的显著扩张,伴随脂肪细胞主导(CC1)和免疫富集(CC7和CC13)生态型的收缩。这些变化突出血管-基质激活作为硬化生态系统的核心特征。这与特化骨内皮亚群("H型"血管)将血管生成与成骨耦合并刺激骨祖细胞活性的证据一致,以及成纤维细胞与这些内皮群体合作通过促成骨和基质重塑信号促进异常骨化。
- 除了组成变化,空间邻域分析揭示硬化微环境中生态型间连通性显著增强。差异相互作用分析进一步显示网络枢纽从CC9/CC6/CC13转向CC3/CC11/CC5/CC4,将协调重新分配到纤维-基质、血管和骨周转生态型。与这一转变一致,配体-受体分析识别重塑的ECM/粘附信号(胶原/层粘连蛋白轴汇聚于CD44),支持骨硬化中增强的基质介导耦合。改变的内皮/血管周围模块(PECAM1-PECAM1、CDH5-CDH5、PDGFD-PDGFRB和ANGPTL4相关相互作用)进一步支持硬化SCB微环境中扰动的基质-血管交叉对话和血管生成重塑。免疫相关相互作用在特定生态型界面重新分配。总之,这些发现表明骨硬化SCB重塑反映生态型丰度、邻域架构和细胞间通讯的协调重连,汇聚于基质沉积、血管重塑和局部炎症信号。
- 在成骨细胞富集生态型CC2中,糖酵解和TCA循环通量减少与TCA循环中间体、氨基酸和核苷酸/UDP-糖池耗竭的组合描绘了一种不适合支持胶原分泌和矿化高能量和生物合成需求的代谢状态。成骨细胞分化和骨形成已知需要强大的ATP产生和持续的碳和氮底物供应用于蛋白质合成和基质囊泡生物发生,相当一部分线粒体ATP专门用于胶原和ECM产生。在这种底物限制条件下,受损的氨基酸可用性和减少的核苷酸/UDP-糖池预期损害胶原合成、折叠和糖基化,从而易患缺陷基质加工和ER应激,这是异常成骨细胞功能和矿化缺陷的已建立原因,尽管成骨细胞数量保持或增加。
- 在Osteo-MSC富集生态型CC8中明显存在类似但更早的代谢约束。CC8显示葡萄糖摄取、TCA循环氧化步骤和糖基化前体合成的选择性瓶颈,而非中心碳代谢的全局失败,同时维持基础糖酵解/TCA循环骨架。这种模式表明硬化微环境中的MSCs在代谢支持不足下启动成骨承诺,当生物合成需求超过代谢能力时已知产生不完全分化或功能次优的成骨细胞。同时,这种受限代谢状态与脂肪生成承诺不相容:乙酰-CoA不足、NADPH可用性降低和氧化压力增加抑制PPARγ转录程序,从而限制MSC分化为骨髓脂肪细胞。
- 破骨细胞富集CC11生态型中观察到的代谢抑制表明,受损的破骨细胞生物能量学可能是骨小梁硬化的重要贡献者。减少的糖酵解进入和TCA循环活性降低表明显著的能量限制,与破骨细胞对质子泵送、细胞骨架组织和骨基质降解所需的囊泡运输的高ATP需求一致。丝氨酸-甘氨酸-半胱氨酸通路中间体和谷胱甘肽前体的耗竭进一步表明氧化还原缓冲改变,GSH/ROS轴的扰动已被证明调节破骨细胞分化和吸收活性。这种代谢不足预期降低骨吸收能力,从而有利于净矿物积累并促成硬化,与遗传和实验研究表明破骨细胞功能障碍或内在吸收缺陷导致骨量增加一致。
- 这些发现共同表明OA中的异常骨形成不是来自单个细胞类型的失调,而是来自整个SCB生态系统的重组,重塑空间关系、细胞间通讯网络和代谢资源分配。
- 若干局限性值得考虑。第一,虽然没有硬化特征的样本代表关节置换标本中最生物学适当和良好控制的比较物,但它们可能不能准确代表真正健康组织。第二,探索性分析在相对有限的队列中进行,可能限制发现的普适性。尽管如此,本研究为未来在更大独立队列、跨多个关节部位和多样患者群体中的研究提供了基础,这对于验证和扩展此处报告的观察至关重要。第三,横断面设计阻止了直接评估疾病进展期间的时间动态。因此,识别的FN1-SDC2和COL1A1-DDR2相互作用应解释为硬化相关候选信号轴,为未来OA相关软骨下硬化的机制研究提供重要线索,而非硬化的明确因果驱动因素。第四,虽然发现表明peri-core骨细胞在塑造局部硬化重塑微环境中的潜在作用,但这一观察仍然是相关性的,需要进一步的机制验证。第五,本研究中使用的空间转录组数据不在单细胞分辨率,可能不能完全捕获骨微环境内细胞-细胞相互作用的复杂性。最后,从转录组数据推断的代谢通量需要进一步的功能验证。
- 总之,这个空间图谱揭示骨关节炎SCB硬化反映多细胞生态系统的协调重组,以空间架构破坏、细胞间信号网络改变和底物应激下代谢重连为特征。这些见解为开发靶向病理骨微环境而非孤立细胞过程的疾病修饰疗法提供了概念框架。总之,此处提供的分析框架和空间图谱代表对追求OA和相关肌肉骨骼疾病机制见解或治疗靶点的科学界的宝贵资源。
方法部分
scRNA-seq data processing(scRNA-seq数据处理)
- 为了识别SCB ST数据中的主要细胞谱系,重新分析了来自12个人类股骨头样本的scRNA-seq数据集。
- 单细胞RNA-seq数据使用Seurat以相同工作流程处理。保留表达300-10,000个独特基因、少于10,000个独特UMIs和<10%线粒体读取的细胞。对于每个样本,计数对数归一化,识别top 2000高变特征,数据缩放,进行主成分分析(PCA)。使用top 30主成分构建共享最近邻图,应用Louvain聚类定义转录簇。
- 双细胞使用DoubletFinder(v2.0.6)在每个样本基础上识别和去除,使用top 30 PCs,预期双联体率设为n.cells/125,000,其他参数默认设置。所有样本合并无需额外计算批次校正。合并数据集如上处理并使用从top 30 PCs计算的均匀流形近似和投影(UMAP)可视化。
- 簇特异性标记基因使用Seurat的FindAllMarkers函数和Wilcoxon秩和检验识别,降采样至每簇最多1000个细胞。细胞类型注释基于经典标记基因表达分配,可能的伪影簇(限于单样本或与残留双联体一致)使用VisCello(v1.0.0)交互检查识别和去除,随后迭代降维和重新聚类。一个低RNA间充质群体(RNA^lo MSCs)从下游分析中排除。
ST data processing(ST数据处理)
- 原始数据使用10x Genomics Space Ranger(v3.1.2)和GRCh38人类参考基因组预处理和比对。为了实现与标准Visium平台的可比性,HD数据在Space Ranger中使用56 μm的bin大小处理。所得输出作为Seurat中下游ST分析的初始输入。
- 对于质量控制,低RNA计数(骨髓:<50独特分子标识符(UMIs);骨小梁:<25 UMIs)或高线粒体含量(>20%)的spots/bins被过滤掉。对数归一化后,识别top 3000高变特征并缩放,随后PCA。跨样本整合使用Seurat中实现的Harmony整合工作流程进行,整合数据随后用于聚类分析和UMAP可视化。
- 为了确定每个spot/bin的细胞类型组成,通过spacexr(v2.2.1)包应用基于参考的稳健细胞类型分解(RCTD)去卷积算法。算法利用从ST数据集创建的RCTD对象和含有20个细胞状态的注释scRNA-seq参考数据。RCTD在full模式下执行,产生每个细胞表型的spot/bin水平丰度估计,形式为权重矩阵。
Identification of core-halo structure(核心-晕结构的识别)
- 为了表征空间组织的成骨区域,基于空间bins/spots中成骨细胞比例定义核心-晕结构。核心区域识别为成骨细胞丰度top 15%内的bins/spots。为了减少潜在噪声,排除少于四个连续bins/spots的小核心。
- 晕区域然后定义为围绕每个核心的六层同心bins/spots。简言之,阈值从top 5%成骨细胞丰度开始评估,以5%增量增加,最优阈值定义为晕区域在top 15通路中不再表现出成骨通路主导富集的最低值。中间阈值额外测试以确认最终选择。这种核心-晕架构捕获成骨微环境,并使系统剖析驱动病理骨积累的空间机制成为可能。
Functional enrichment and pathway analysis(功能富集和通路分析)
- Gene Ontology(GO)富集分析使用clusterProfiler包对org.Hs.eg.db数据库的GO生物过程(BP)进行。富集P值使用Benjamini-Hochberg方法调整,显著性阈值设为调整P值<0.05。顶级富集通路使用显示基因比率和调整P值的点图可视化。
- 基因集变异分析(GSVA)使用GSVA包进行。Hallmark基因集从Molecular Signatures Database(MSigDB)使用msigdb包获得。差异通路分析使用limma包进行。
- 通路活性评分使用PROGENy progeny函数计算,使用每个通路500个最响应基因。计算不同生态型的平均通路活性评分。对于每个spot/bin,使用PROGENy的模型矩阵通过使用每个转录足迹的top 500基因估计信号通路活性。
Spatial intercellular dependency analysis(空间细胞间依赖性分析)
- 应用mistyR量化每个主要细胞类型的丰度如何有助于解释其他细胞类型的丰度,基于来自硬化和非硬化样本的RCTD衍生细胞类型丰度估计。分析纳入两个空间视图:内在视图,捕获同一spot/bin内去卷积估计之间的关联;和juxta视图,总结邻近spots/bins的去卷积估计(使用最大邻域半径六spots/bins)。对于每个载玻片,从每个视图衍生的标准化中位数重要性被聚合,并解释为跨空间背景的细胞类型依赖性指标,反映共定位或互斥模式而非暗示因果性。
Spatial co-occurrence analysis(空间共现分析)
- 为了识别细胞类型之间的空间共定位模式,使用去卷积丰度矩阵进行共现分析。细胞类型丰度使用定义阈值(0.1)二值化,跨所有spots/bins评估成对共现。正关联(共定位)和负关联(互斥)的统计显著性使用超几何分布评估。对于每个细胞类型对,计算观察到的共现频率、随机分布下的预期共现和相应P值以识别显著空间共现模式。
Spatially resolved cell-cell communication analysis(空间分辨细胞-细胞通讯分析)
Spatial colocalization of ligand-receptor pairs(配体-受体对的空间共定位)
- 对于ST数据,首先使用基于k-最近邻(kNN)的网络方法评估配体-受体对的空间共定位。对于每个配体-受体对,首先识别配体/受体表达最高的top 20% spots/bins。然后从所有spots/bins的空间坐标构建kNN图,通过计数连接配体高spots/bins到受体高spots/bins的最近邻边数计算基于度的连通性评分。
- 为了评估统计显著性,在空间随机性零假设下进行置换检验,通过重复选择与配体高和受体高组相同大小的随机spot/bin集并重新计算连通性评分。每个配体-受体对的观察连通性评分(S_obs)与置换衍生的零分布比较,标准化z评分计算为:z=(S_obs-μ_null)/σ_null,其中μ_null和σ_null分别表示零分布的均值和标准差。P值从相应的正态分布获得,并使用Benjamini-Hochberg程序进行多重检验调整。调整P值<0.05的配体-受体对被认为表现出显著空间共定位,表明配体高表达的spots/bins与受体高表达的spots/bins的空间连通性高于随机预期。
Cell type attribution via elastic net regression(通过弹性网络回归的细胞类型归因)
- 为了推断促成空间共定位配体-受体相互作用的发送者和接收者细胞类型,使用弹性网络回归整合RCTD衍生细胞类型丰度与配体-受体表达模式。
- 对于每个显著共定位的配体或受体基因g,将检测到该基因表达的spots/bins中的归一化表达建模为细胞类型丰度的函数(公式2)。正则化参数λ使用k折交叉验证选择(k≤5,每个模型最少20 spots/bins)。选择λ_1se,即交叉验证误差在最小交叉验证误差一个标准误差内的最大λ。该标准用于偏向更简约的模型。
- 细胞类型系数提取并归一化到[0,1]区间(公式5),其中s_gj∈[0,1]代表细胞类型j对基因g表达的归一化贡献评分。对于每个配体-受体对LR=(L,R),s_Lj>0的细胞类型指定为潜在发送者细胞,s_Rj>0的指定为接收者细胞。这个框架量化每个去卷积细胞类型对观察到的空间配体-受体通讯模式的相对贡献。
Detection of spatial ecotypes(空间生态型的检测)
- 为了识别细胞生态型,应用ISCHIA算法。最优聚类数(k)使用肘部法选择为13,基于k值从2到30范围内的平均簇内方差。在运行无监督聚类之前,对Visium/Visium HD基因表达spots/bins进行PCA降维。然后将spots/bins的PCA嵌入用作Composition-cluster函数的输入,将spots/bins分组为13个 distinct 簇,每个以独特的细胞组成为特征。这些簇称为"空间生态型",基于功能相关细胞类型倾向于在组织微环境内以特征性空间模式共现的原则。
Spatial neighborhood analysis(空间邻域分析)
- 使用Squidpy gr.spatial_neighbors函数构建空间连通性图,其中节点代表单个spots/bins,边代表邻近spots/bins之间的空间相互作用。为了识别对特定生态型邻域表现出显著富集的 пространственные生态型,使用gr.nhood_enrichment函数进行邻域富集分析。对于诊断组之间的比较分析,从连通性图提取边计数并归一化每个生态型的相互作用频率。
- 通过检查即时和扩展邻域扩展这种空间背景分析。具体而言,计算两个空间尺度的连通性图:1环邻域(捕获直接相邻spots/bins)和6环邻域(捕获扩展空间背景)围绕每个目标spot/bin。这种多尺度方法使评估不同组织区域和诊断条件下局部和更广泛空间相互作用模式成为可能。
Differential inter-ecotype interaction network and communications analysis(差异生态型间相互作用网络和通讯分析)
- 基于已知配体-受体对表达的生态型间相互作用使用CellChat推断,以空间生态型为分组变量。CellChat对象使用归一化表达矩阵、元数据和spot坐标通过createCellChat函数在空间模式下构建。硬化和非硬化微环境之间的差异生态型间相互作用网络使用netVisual_diffInteraction可视化,选定生态型对之间的配体-受体通讯概率使用netVisual_bubble比较。这些分析用于表征网络水平通讯重连和生态型特异性信号差异。
Estimation of spot-level/bin-level metabolic flux in ST data(ST数据中spot/bin水平代谢通量的估计)
- 为了估计空间转录组数据中spot/bin水平代谢通量,将图神经网络模型应用于ST数据。归一化表达矩阵用于代谢通量推断。ST数据首先进行插补以考虑技术dropout和稀疏基因表达。训练模型然后预测每个spot/bin跨多个代谢模块和通路的代谢通量值。为了识别扰动条件下的代谢改变,进行差异代谢通量分析。
生活很好,有你更好。
原创声明:本文系作者授权腾讯云开发者社区发表,未经许可,不得转载。
如有侵权,请联系 cloudcommunity@tencent.com 删除。
目录
腾讯云开发者

Copyright © 2013 - 2026 Tencent Cloud. All Rights Reserved. 腾讯云 版权所有
深圳市腾讯计算机系统有限公司 ICP备案/许可证号:粤B2-20090059  粤公网安备44030502008569号
腾讯云计算(北京)有限责任公司 京ICP证150476号 | 京ICP备11018762号